深度解析医学证据,lxfs.net为你支撑决策
【论著】
本研究拟探讨组蛋白脱乙酰酶(HDAC)7在围手术期神经认知障碍(PND)小鼠海马神经元铁死亡中的作用,以期为PND的防治提供新靶点。
1 材料与方法
1.1 动物实验
1.1.1 实验动物
无特定病原体级健康雄性C57BL/6小鼠72只,18月龄,体重30~40 g,所有小鼠置于标准实验条件下:温度24 ℃~26 ℃,湿度50%~60%,光照/黑暗周期各12 h,自由摄食饮水。
1.1.2 小鼠PND模型制备
采用小鼠胫骨骨折手术建立PND模型:腹腔注射1.25%三溴乙醇250 mg/kg麻醉小鼠,将小鼠固定于操作台后,对左后肢进行备皮、消毒处理,小鼠足趾夹持反射消失后,在小鼠左膝外侧2 mm切开,然后钝性分离附着在胫骨平台附近的筋膜和肌肉组织,以充分暴露胫骨平台,随后将0.38 mm的针插入骨髓腔,在胫骨下1/3部位进行剪断操作,最后对伤口进行缝合和消毒并在伤口处涂抹利多卡因凝胶镇痛。完成手术后将小鼠放回笼中,苏醒期间提供保温措施,苏醒后恢复正常饮食与活动。
1.1.3 分组处理
72只小鼠按随机数字表法分为6组(每组12只):正常组(N组),仅常规饲养,不制备PND模型及给药处理;模型组(P组),制备PND模型;铁死亡抑制剂组(PF组),制备PND模型后,连续3 d腹腔注射溶解在二甲基亚砜(DMSO)中的铁抑素‑1(Fer‑1)5 mg/kg;术后3 d溶剂对照组[PD(术后3 d)组],制备PND模型后,连续3 d腹腔注射等剂量的DMSO;HDAC7抑制剂组(PT组),制备PND模型前2周,每天腹腔注射溶解在DMSO中的N‑[2‑甲基‑2‑(2‑苯基‑4‑恶唑基)丙基]‑3‑[5‑(三氟甲基)‑1,2,4‑恶二唑‑3‑基]苯甲酰胺(TMP195)50 mg/kg;术前2周溶剂对照组[PD(术前2周)组],制备PND模型前2周,每天腹腔注射等剂量DMSO。
每组12只小鼠均于术后第3天进行Y迷宫实验。Y迷宫实验结束后,采用随机数字表法将12只小鼠分为两部分,3只小鼠使用印迹法(Western blot)检测海马组织HDAC7、长链脂酰辅酶A合成酶4(ACSL4)、谷胱甘肽过氧化物酶4(GPX4)水平,9只小鼠用于测定海马组织亚铁离子(Fe2+)、丙二醛(MDA)、谷胱甘肽(GSH)含量(3只用于Fe²⁺含量测定,3只用于MDA含量测定,3只用于GSH含量测定)。
1.1.4 Y迷宫实验
Y迷宫由3个白色等长的塑料封闭臂(长36 cm、高 13 cm、宽 7 cm)组成,每个臂之间角度为120°,各臂分别标记上A、B、C。首先将C壁用隔板挡住,将小鼠放置在A臂的远端,让小鼠在Y迷宫中自由探索15 min,探索结束后将小鼠放回笼位休息1 h,之后将C壁隔板取出,将小鼠从A臂放入开始探索,时间5 min,记录小鼠C臂停留时间、C臂进入次数。
1.1.5 Western blot检测小鼠海马组织HDAC7、ACSL4、GPX4水平
采用二氧化碳窒息法处死小鼠并取海马组织,将海马组织剪碎后加入组织裂解液,裂解30 min后离心[4 ℃下13 000 r/min,离心10 min(离心半径8.2 cm)]取上清液,采用二喹啉甲酸法测定蛋白浓度。取30 μg总蛋白上样后进行电泳、转膜及蛋白封闭,Tris‑吐温缓冲盐溶液(TBST)洗膜后,加入一抗HDAC7(1∶1 000)、ACSL4(稀释度1∶5 000,)、GPX4(1∶20 000)、β‑肌动蛋白(β‑actin)(1∶1 000),于4 ℃下孵育过夜;次日,用TBST洗脱一抗后使用相应二抗孵育2 h。采用增强化学发光液显影,采用Image J软件处理并分析条带灰度值。以目的条带灰度值与内参条带灰度值的比值反映目的蛋白水平。
1.1.6 小鼠海马组织Fe2+、MDA、GSH含量测定
Fe2+含量检测试剂盒、MDA含量检测试剂盒、还原性GSH含量检测试剂盒均购自北京索莱宝科技有限公司。采用二氧化碳窒息法处死小鼠,取海马组织,加入提取液进行冰浴匀浆,离心(Fe2+:4 ℃下10 000 r/min,离心10 min。MDA:4 ℃下8 000 r/min,离心10 min。GSH:4 ℃下12 000 r/min,离心10 min。离心半径均为8.2 cm)后取上清液置于冰上待测。使用酶标仪分别于593 nm(Fe2+)、532 nm(MDA)、600 nm(MDA)、412 nm(GSH)处测定光密度值,根据说明书换算Fe2+、MDA、GSH含量。
1.2 细胞实验
1.2.1 小鼠神经元细胞系HT22细胞培养及模型制备
参照既往研究建立神经元损伤模型:BV2小鼠小胶质细胞和HT22小鼠神经元细胞在含1%青链霉素双抗、10%胎牛血清的Dulbecco改良Eagle培养基中培养,细胞放置在37 ℃,含5%CO2、95%O2的细胞培养箱中进行培养。采用脂多糖(LPS)1 000 μg/L刺激24 h活化BV2细胞,收集活化BV2细胞培养液上清与Dulbecco改良Eagle培养基完全培养液按1∶1比例混合,培养HT22细胞24 h制备神经元损伤模型。
1.2.2 转染及分组
HDAC7特异性干扰小RNA(siRNA)由上海汉恒科技有限公司合成,siRNA‑HDAC7寡核苷酸正向引物序列为5'‑CACUUUCCCUUGCGUAAAATT‑3',反向引物序列为5'‑UUUUACGCAAGGGAAAGUGTT‑3'。具体过程如下:将细胞培养至铺满培养瓶的50%~60%,无血清培养Opti‑MEM稀释siRNA及转染试剂Lipofectamine 3000,随后混合siRNA与转染试剂在室温下孵育20 min,siRNA/转染试剂混合液转染细胞48 h,用于后续实验。采用随机数字表法将HT22细胞分为6组(每组36瓶):空白对照组(C组),正常培养不做任何处理;阴性对照组(NC组),转染阴性siRNA后正常培养;HDAC7敲低组(siHDAC7组),转染HDAC7‑siRNA后正常培养;脂多糖处理组(LPS组),制备神经元损伤模型;阴性对照+脂多糖处理组(NC+LPS组),转染阴性siRNA后制备神经元损伤模型;HDAC7敲低+脂多糖处理组(siHDAC7+LPS组),转染HDAC7‑siRNA后制备神经元损伤模型。
1.2.3 Western blot检测细胞HDAC7、ACSL4、GPX4水平
每组随机取3瓶细胞,提取细胞蛋白,加入细胞裂解液裂解,离心[4 ℃下12 000 r/min,离心10 min(离心半径8.2 cm)]后取上清液,采用二喹啉甲酸法进行蛋白定量,其余实验步骤同检测小鼠海马组织蛋白。
1.2.4 免疫荧光染色检测HDAC7、GPX4表达
每组随机取3瓶细胞,HT22小鼠神经元细胞以适宜密度接种于多聚‑D‑赖氨酸包被的载玻片上。待细胞贴壁及相应处理后,采用4%多聚甲醛固定20 min,采用0.1% Tween‑20通透15 min。随后加入10%山羊血清,37 ℃封闭1 h。加入一抗HDAC7(1∶200)、GPX4(1∶400),4 ℃孵育过夜;TBST洗涤后加入相应荧光标记的二抗,室温避光孵育1 h。经4',6‑二脒基‑2‑苯基吲哚复染细胞核后,在荧光显微镜下观察并采集图像。
1.2.5 细胞Fe2+、MDA、GSH含量测定
每组随机取6瓶用于Fe²⁺含量测定,6瓶用于MDA含量测定,6瓶用于GSH含量测定。检测试剂盒与动物实验一致,HT22细胞经处理后置于冰上,磷酸盐缓冲液洗涤后加入对应试剂裂解,离心(同1.1.6)后取上清液。其余步骤同检测小鼠海马组织。
1.2.6 活性氧(ROS)水平测定
每组随机取6瓶细胞,使用无血清培养基按照1∶1 000稀释DCFH‑DA,最终浓度为10 μmol/L。于37 ℃孵育HT22细胞30 min,在荧光显微镜下观察荧光表达情况,最后使用Image J软件统计平均荧光强度。
1.2.7 脂质过氧化物(LPO)水平测定
每组取6瓶细胞,使用磷酸盐缓冲液按照1∶1 000稀释BODIPY 581/591 C11,最终浓度为2 μmol/L。于37 ℃孵育HT22细胞30 min,其余步骤同ROS检测。
2 结果
2.1 C臂停留时间、C臂进入次数比较
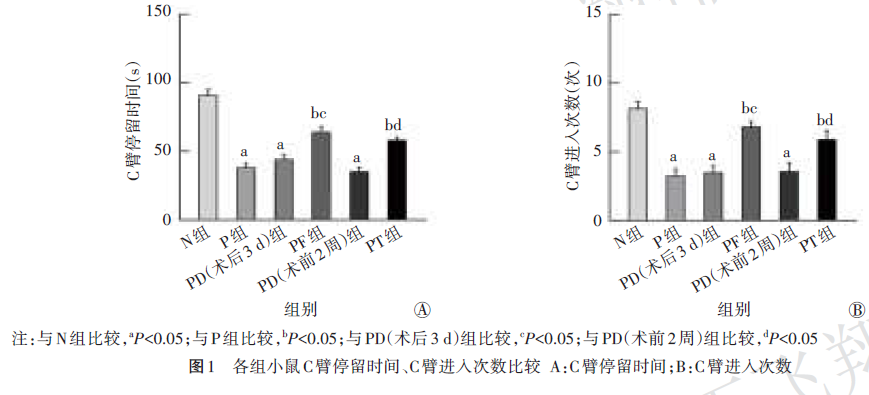
与N组比较,P组、PD(术后3 d)组、PD(术前2周)组小鼠C臂停留时间、C臂进入次数较少(均P<0.05)。与P组、PD(术后3 d)组比较,PF组小鼠C臂停留时间、C臂进入次数较多(均P<0.05);与P组、PD(术前2周)组比较,PT组小鼠C臂停留时间、C臂进入次数较多(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图1。
2.2 使用Fer‑1后小鼠海马组织HDAC7、ACSL4、GPX4水平比较
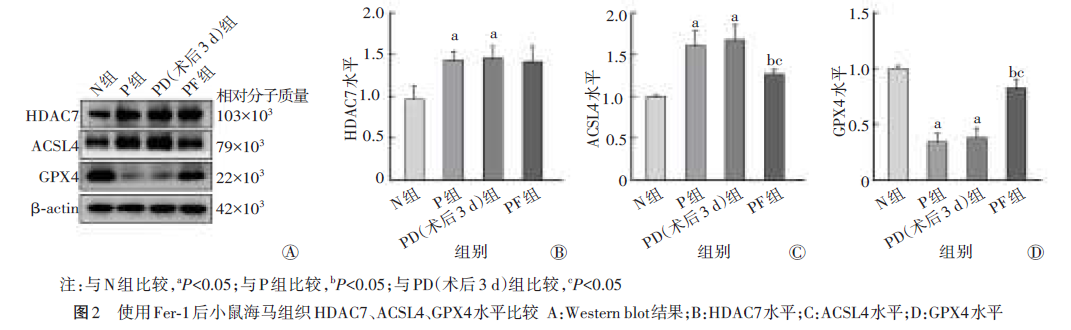
与N组比较,P组、PD(术后3 d)组小鼠HDAC7、ACSL4水平较高,GPX4水平较低(均P<0.05)。与P组、PD(术后3 d)组比较,PF组小鼠ACSL4水平较低,GPX4水平较高(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图2。
2.3 使用TMP195后小鼠海马组织HDAC7、ACSL4、GPX4水平比较
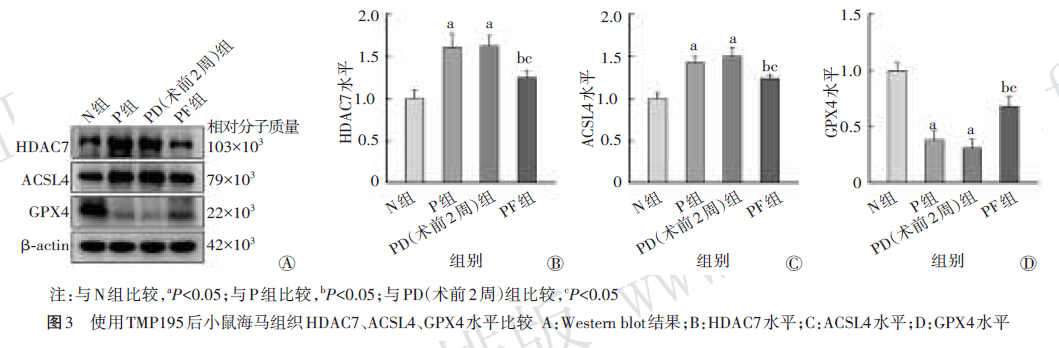
与N组比较,P组、PD(术前2周)组小鼠HDAC7、ACSL4水平较高,GPX4水平较低(均P<0.05)。与P组、PD(术前2周)组比较,PT组小鼠HDAC7、ACSL4水平较低,GPX4水平较高(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图3。
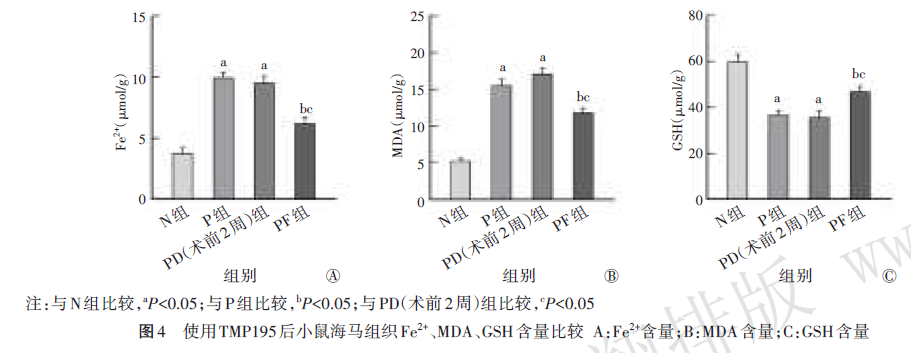
2.4 使用TMP195后小鼠海马组织Fe2+、MDA、GSH含量比较
与N组比较,P组、PD(术前2周)组小鼠Fe2+、MDA含量较高,GSH含量较低(均P<0.05)。与P组、PD(术前2周)组比较,PT组小鼠Fe2+、MDA含量较低,GSH含量较高(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图4。
2.5 各组神经元细胞HDAC7、ACSL4、GPX4水平及HDAC7、GPX4荧光表达比较
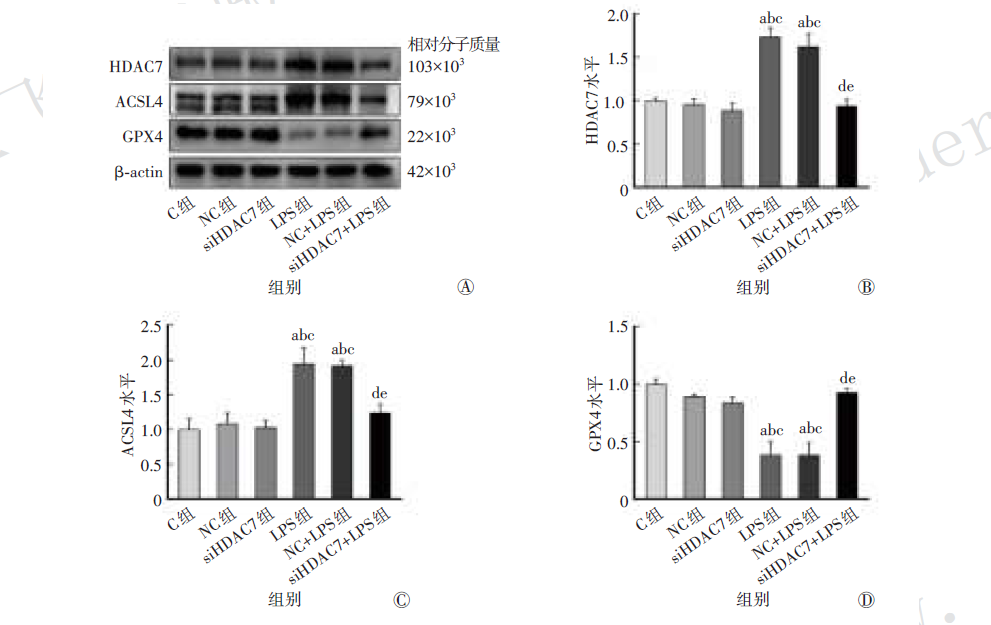
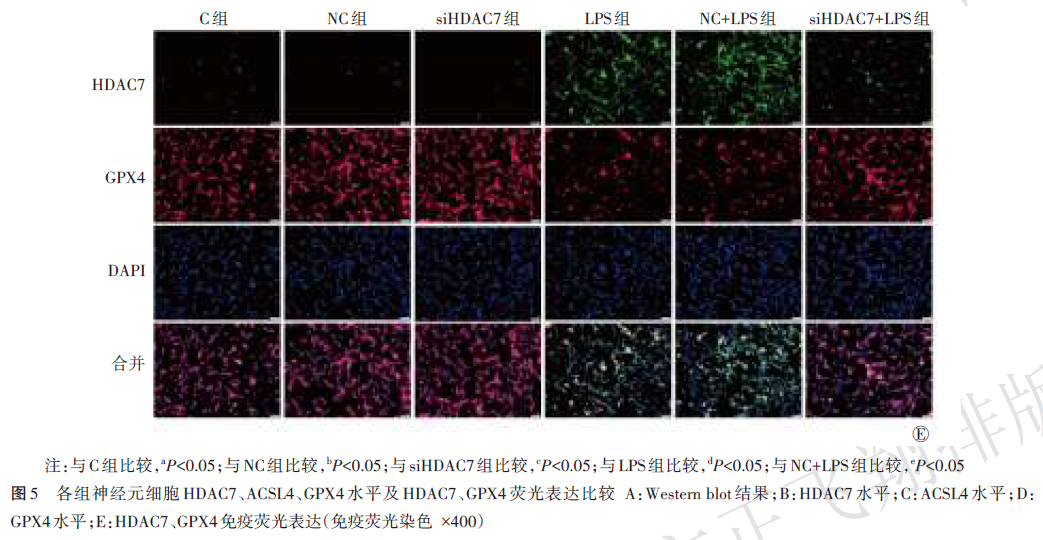
与C组比较:LPS组、NC+LPS组细胞HDAC7、ACSL4水平较高,GPX4水平较低(均P<0.05);LPS组细胞HDAC7荧光表达增强,GPX4荧光表达减弱。与NC组比较,LPS组、NC+LPS组细胞HDAC7、ACSL4水平较高,GPX4水平较低(均P<0.05)。与siHDAC7组比较,LPS组、NC+LPS组细胞HDAC7、ACSL4水平较高,GPX4水平较低(均P<0.05)。与LPS组比较:siHDAC7+LPS组细胞HDAC7、ACSL4水平较低,GPX4水平较高(均P<0.05);siHDAC7+LPS组细胞HDAC7荧光表达减弱,GPX4荧光表达增强。与NC+LPS组比较,siHDAC7+LPS组细胞HDAC7、ACSL4水平较低,GPX4水平较高(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图5。
2.6 各组神经元细胞Fe²⁺、MDA、GSH含量及ROS、LPO水平比较
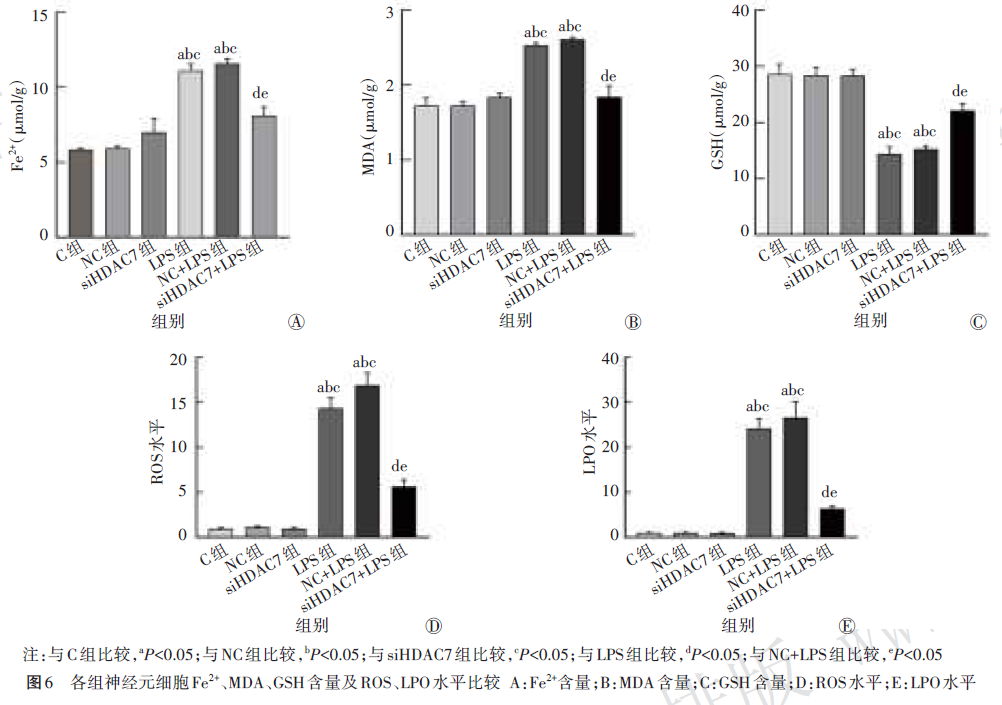
与C组比较,LPS组、NC+LPS组细胞Fe2+、MDA含量较高,GSH含量较低,ROS、LPO水平较高(均P<0.05)。与NC组比较,LPS组、NC+LPS组细胞Fe²⁺、MDA含量较高,GSH含量较低,ROS、LPO水平较高(均P<0.05)。与siHDAC7组比较,LPS组、NC+LPS组细胞Fe²⁺、MDA含量较高,GSH含量较低,ROS、LPO水平较高(均P<0.05)。与LPS组比较,siHDAC7+LPS组细胞Fe2+、MDA含量较低,GSH含量较高,ROS、LPO水平较低(均P<0.05)。与NC+LPS组比较,siHDAC7+LPS组细胞Fe²⁺、MDA含量较低,GSH含量较高,ROS、LPO水平较低(均P<0.05)。其余指标差异无统计学意义(均P>0.05)。见图6。
3 讨论
本研究结果表明,与N组比较,P组小鼠C臂停留时间、C臂进入次数较少,提示PND模型制备成功。
本研究结果显示,P组小鼠海马组织出现了ACSL4水平较高和GPX4水平较低的铁死亡特征性改变,而铁死亡抑制剂可以逆转上述变化,同时发现使用铁死亡抑制剂后术后小鼠短期记忆功能得到恢复,提示铁死亡的发生可能参与了PND的病理进程。
本课题组单细胞测序和预实验结果显示,PND小鼠海马组织HDAC7高表达,且研究表明炎症和铁死亡的发生均被认为可能参与了PND的病理进程,因此推测HDAC7可能通过参与神经元铁死亡的发生从而参与了PND的发展;本研究发现,P组小鼠海马组织HDAC7水平较高,提示其可能参与PND进程。这一推测与HDAC家族其他成员在PND中的研究结果相符。近年来HDAC家族在PND中的作用也逐渐受到关注:HDAC6通过调控热休克蛋白90乙酰化水平激活糖皮质激素受体信号,进而导致老年小鼠术后认知功能下降。在PND小鼠海马中,环状RNA蛋白激酶B3通过吸附微RNA‑106a‑5p降低HDAC4表达,影响肌细胞增强因子2C轴,最终参与神经元凋亡的调控。HDAC3是连接手术创伤与长期认知障碍的关键节点,其通过重塑小胶质细胞的染色质状态,介导持续性神经炎症。这些研究表明,靶向HDAC家族不同成员可通过调控神经炎症、神经元凋亡等多种机制参与PND进程。然而,目前关于HDAC7在PND中的研究鲜见报道。为了进一步验证HDAC7是否与PND有关,动物实验中,对小鼠使用了HDAC7抑制剂TMP195,制备PND模型后发现,TMP195逆转了P组中出现的铁死亡特征性改变,改善了小鼠短期记忆功能。细胞实验中,采用LPS诱导BV2细胞发生炎症反应,模拟PND中典型的神经炎症,随后建立BV2‑HT22共培养系统模拟手术创伤以制备神经元损伤模型,通过干扰RNA抑制HDAC7的表达,Western blot结果发现,与C组比较,LPS组神经元细胞HDAC7、ACSL4水平较高,GPX4水平较低;而敲低HDAC7则下调了ACSL4水平,上调了GPX4水平。免疫荧光染色结果显示,LPS组神经元细胞HDAC7荧光表达增强,而GPX4荧光表达减弱;敲低HDAC7后,GPX4荧光表达明显回升。该结果进一步证实了HDAC7对GPX4的负向调控作用,提示抑制HDAC7的表达能抑制神经元铁死亡的发生。
为了进一步研究HDAC7是否与神经元铁死亡相关,本研究结果显示,P组小鼠海马组织Fe2+、MDA含量较高,GSH含量较低,而使用TMP195后逆转了上述改变。细胞实验中,LPS组神经元细胞Fe2+、MDA含量较高,GSH含量较低,ROS、LPO水平较高,而敲低HDAC7可逆转上述改变,提示抑制HDAC7的表达能抑制铁死亡的发生。
有研究表明,NF‑κB磷酸化水平升高可抑制胱氨酸‑谷氨酸逆向转运蛋白核心亚基溶质载体家族7成员11(SLC7A11)的表达,减少GSH合成,最终导致GPX4活性降低而引发铁死亡。
基于以上结果,本研究推测,HDAC7在神经元中同样可通过蛋白支架功能调控NF‑κB的磷酸化水平,进而影响SLC7A11/GPX4轴,参与铁死亡的发生,因此后续研究将探索HDAC7在神经元中是否通过HDAC7‑NF‑κB‑SLC7A11通路导致铁死亡的发生,旨在揭示HDAC7与PND的相关性,为开发靶向药物提供理论依据。
国际麻醉学与复苏杂志,2026,47(10):881-890 .
DOI:10.3760/cma.j.cn321761-20251215‑00614