深度解析医学证据,lxfs.net为你支撑决策
摘要
背景:伴有睡眠障碍(SD)的术后谵妄(POD)是围手术期神经认知健康方面的一大重要问题。最新证据表明这两种状况之间可能存在双向关系;然而,其潜在机制尚不明确,目前也缺乏有效的治疗干预措施。延胡索(RC)是一种以镇痛和抗炎特性著称的中药材,此前尚未在认知功能障碍和睡眠调节领域进行过相关研究。
目的:本研究旨在阐明延胡索及其生物活性化合物缓解认知缺陷和睡眠结构紊乱的机制。本研究通过结合疾病靶点数据库挖掘、生物信息学分析,以及在神经炎症的体内和体外模型中的验证来开展。
方法:通过胫骨骨折手术结合脑电图/肌电图(EEG/EMG)对睡眠结构的监测,在受试者中识别出POD和睡眠障碍。利用这些评估结果初步评估了RC对认知功能和睡眠结构的影响。随后,采用结合LASSO回归分析的网络药理学方法,以识别潜在的治疗靶点以及对RC在手术合并SD情况下产生效应起关键作用的生物活性化合物。这些发现随后通过“手术+SD”大鼠模型的体内实验,以及利用七氟烷暴露诱导的原代胶质细胞炎症模型进行的体外研究得到了验证。
结果:RC(尤其是较高剂量时)显著改善了手术大鼠的认知缺陷(通过莫里斯水迷宫和新物体重认测试显示),并恢复了其睡眠结构(脑电图/肌电图记录证实)。网络药理学分析将酪氨酸羟化酶(TH)识别为关键节点,并将四氢黄连碱(THC)识别为主要活性化合物。RC和THC降低了白细胞介素-1β(IL-1β)和诱导型一氧化氮合酶(iNOS)的水平,提高了多巴胺水平,并使TH、多巴胺受体D2、NLRP3、裂解型半胱天冬酶-1以及gasdermin D氨基端片段的表达恢复正常。这些干预措施还逆转了手术大鼠快速眼动睡眠的减少。体外分析表明,THC能有效抑制胶质细胞中的炎症,而TH抑制剂α-甲基-对-酪氨酸(AMPT)可抵消其作用。此外,siRNA介导的DRD2消除了THC的抗炎和抑制NLRP3的作用,从而证实THC是通过TH/DRD2信号通路发挥其保护作用的。
结论:延胡索及其活性成分THC可显著减轻术后谵妄(POD)伴发的情绪障碍(SD)所致的认知功能障碍和睡眠障碍,这很可能是通过调节TH活性并抑制NLRP3炎性小体的活化实现的。这些发现提供了机制层面的见解和临床前证据,支持针对神经炎症和神经递质通路开发新型围手术期神经保护策略。
关键词:术后谵妄;睡眠障碍;延胡索;四氢延胡索碱;酪氨酸羟化酶
1. 引言
术后谵妄(POD)和睡眠障碍是手术后常见的并发症,会严重阻碍患者康复并降低生活质量。文献中已广泛记载了这两种状况之间的双向关系——即睡眠障碍既预示着术后谵妄,又通过加剧神经炎症而使其恶化。有证据表明,睡眠障碍可能通过促进β-淀粉样蛋白的积累和引发全身性炎症来增加阿尔茨海默病风险——这些病理生理过程与POD的发病机制相似。此外,睡眠障碍与认知功能障碍之间的关联可能通过多种生物学机制介导,包括炎症细胞因子的改变和神经递质系统的失衡。鉴于POD与睡眠障碍的高共病率,加之对其潜在机制的理解尚不充分,目前的治疗选择仍然有限。传统药物治疗(如镇静剂和抗炎药)仅显示出有限的疗效。因此,探索替代治疗药物已成为缓解POD伴发睡眠障碍(SD)的一个紧迫且必要的领域。
中医(TCM)在改善神经认知功能方面展现出巨大潜力。越来越多的证据表明,中医及其生物活性成分可通过多种机制影响神经认知功能。这些机制包括调节神经原纤维缠结、神经递质受体、线粒体功能、氧化应激以及神经炎症通路。例如,白藜芦醇和姜黄素等天然化合物在阿尔茨海默病模型中表现出显著的抗神经炎症作用,并伴有认知能力的提升。延胡索为罂粟科植物延胡索的块茎,是经典中药材。现有研究发现延胡索可通过调控电压门控钠通道、嘌呤能P2X3受体缓解神经病理性疼痛;此外还具备镇静、抗抑郁、抗焦虑的药理活性。但延胡索化学成分复杂,其对认知、睡眠等中枢神经系统领域的作用尚未得到系统研究。
针对上述临床问题,本研究探究延胡索对术后谵妄合并睡眠障碍的治疗潜力及分子机制。借助网络药理学筛选药物关键靶点;构建大鼠胫骨平台骨折模型,利用脑电图/肌电图记录睡眠,模拟术后谵妄合并睡眠障碍病理特征;同时培养原代胶质细胞开展细胞机制实验,阐明延胡索起效的关键信号通路,以期为此类疾病提供新治疗策略。
2. 方法
2.1. 整合数据分析筛选治疗靶点
从OMIM、GeneCards、DisGeNET数据库以及GEO公共数据库(数据集GSE163943、GSE208668、GSE98582)获取术后谵妄、睡眠障碍相关基因,去重后得到疾病候选基因集。
在中药系统药理学数据库TCMSP获取延胡索相关基因,筛选标准:口服生物利用度≥30%,类药性≥0.18;同时人工汇总文献报道的延胡索活性成分;通过SwissTargetPrediction预测化合物靶点,得到延胡索药物基因集。
R语言取疾病基因集与药物基因集交集,得到延胡索干预术后谵妄伴睡眠障碍的潜在靶点。
2.2. 靶点-活性蛋白互作网络构建
为了进一步探究疾病相关靶点与化合物相关靶点之间的相互作用,我们基于重叠基因集,利用STRING数据库(https://string-db.org/)构建了蛋白质-蛋白质相互作用(PPI)网络。将最小相互作用分数设定为0.4,其余所有参数均保持默认设置。为识别网络中的潜在枢纽基因,我们利用Cytoscape(v3.10.2)中的Cyto Hubba插件,应用了六种拓扑分析算法:MCC、MNC、Closeness、Radiality、Degree和EPC。随后,将核心基因与RC的预测生物活性化合物进行映射,从而有助于识别关键靶基因及其对应的生物活性化合物。最终的蛋白质相互作用网络图是基于已识别的核心靶基因生成的。
2.3. 基于LASSO回归的枢纽基因筛选
利用R语言glmnet包进行LASSO回归分析,基于L1惩罚实现变量稀疏化,从手术相关基因集中筛选出术后谵妄伴睡眠障碍最优预测基因。
2.4. GO富集分析与KEGG通路分析
为探究RC与POD合并SD的交叉基因,我们利用了DAVID数据库(https://david.ncifcrf.gov/summary.jsp)。利用DAVID6.8对RC对POD合并SD具有潜在治疗作用的功能蛋白进行了基因本体论(GO)功能注释,并根据分子功能(MF)、细胞组分(CC)和生物过程(BP)对其进行分类。随后进行了KEGG通路富集分析,这有助于识别与RC治疗性植物化学物质作用机制相关的关键基因功能富集及信号通路。
2.5. RC生物活性化合物与手术+SD相关基因集的分子对接
为确定RC中的主要生物活性化合物,其三维分子结构从PubChem数据库(http://www.ncbi.nlm.nih.gov/)中获取。候选靶标蛋白的相应三维结构则来自蛋白质数据银行(PDB,http://www.rcsb.org/)。所有结构均使用PyMOL(3.03版)进行预处理,随后通过Auto Dock Vina进行分子对接。对接性能基于预测的结合自由能和氢键相互作用的存在情况进行评估,结合能值越低,表明结合亲和力越强,复合物稳定性越高。为了便于可视化和解读,优先考虑了结合能最低的对接结果。特别关注了表现出氢键相互作用的配体-靶标对,因为这些相互作用可能增强结合的特异性和强度。
2.6. 核心基因与生物活性化合物的鉴定
基于通过PPI网络、LASSO回归分析、GO富集分析、KEGG通路分析及分子对接结果鉴定出的核心靶点,我们进一步利用R编程对数据进行整合与优化。该方法成功鉴定出RC中的关键生物活性化合物及其对应的核心基因靶点,这些成分可能参与缓解POD合并SD的症状。
2.7. 实验动物
雄性斯普拉格-道利大鼠(280-350g)购自北京查尔斯河实验动物技术有限公司。所有大鼠均饲养于无病原体环境(室温24°C,湿度50%),采用12/12小时明暗周期,饲料和饮水自由摄取。所有实验方案均获得天津医科大学动物护理与使用委员会的批准。每项实验的样本量均根据初步数据通过功效分析确定,在确保统计有效性的同时,严格遵循3R原则(替代、减少和优化),以最大限度地减少动物使用。所有大鼠均使用Excel数据表生成的随机数表随机分配至各实验组。为最大限度减少偏倚,行为评估、睡眠结构评分及分子数据定量均由不知晓处理组别的研究人员进行。为评估不同剂量RC对大鼠模型认知功能和睡眠的影响,我们参考既往研究,建立了一个包含五个不同组的实验设计。各组分类如下:(1)对照组;(2)手术+睡眠剥夺(Surgery+SD)组;(3-5)分别接受50、100或200mg/kg剂量静脉注射RC的手术+SD大鼠。随后,我们考察了低剂量(10mg/kg)和高剂量(20mg/kg)四氢黄连碱(THC)对大鼠认知表现和睡眠参数的影响。
2.8. 术后第1天(POD)实验模型
单侧胫骨骨折的手术操作按照既定方案进行[24]。动物接受七氟烷麻醉(吸入浓度3%,FiO2为0.30)及镇痛(丁丙诺啡,0.1mg/kg,皮下注射)。简而言之,在严格的无菌条件下,于左后肢作纵向切口,随后剥离皮下组织,以显露髌腱邻近的肌肉及胫骨骨膜。随后,将一根0.3mm的不锈钢钉通过髓腔插入胫骨远端。进行截骨术后,对创面进行彻底冲洗,随后用Prolene缝线缝合。在整个手术过程中,持续监测大鼠的唇色和呼吸状况。此外,为确保动物的福祉,在手术及术后恢复阶段,均使用加热垫提供持续的体温支持,将体温仔细维持在正常范围内。
2.9. 识别大鼠的睡眠结构紊乱
为识别伴有睡眠障碍(SD)的术后抑郁(POD)个体,我们对脑电图(EEG)和肌电图(EMG)进行了联合分析,具体操作如下。在异氟烷吸入麻醉下,将脑电图电极固定在手术植入颅骨的四枚颅骨螺钉上。其中两枚螺钉位于额叶皮层(ML±1.5mm,AP+2.5mm),另两枚位于顶叶皮层(ML±1.5mm,AP-2.0mm),从而确保能够稳定获取高质量的脑电图信号。为了进行肌电图监测,还在颈部肌肉中植入了额外的电极。经过一周的恢复期后,建立了“手术+睡眠剥夺(SD)”模型。睡眠剥夺通过低速自动旋转杆系统实现,以确保持续清醒的同时将应激反应降至最低。使用Medusa记录系统(Bio-Signal Technologies,美国)从晚上7:00至次日早晨7:00连续记录脑电图(EEG)和肌电图(EMG)信号。睡眠阶段按10秒时段分为三种状态:觉醒(低振幅、高频脑电图伴持续肌电图活动)、非快速眼动睡眠(NREM)(高振幅脑电图伴delta波,0.5-4Hz)和快速眼动睡眠(REM)(低振幅脑电图伴theta振荡,6-9Hz,且肌电图呈肌张力减退)。信号处理和初步评分通过Lunion Stage平台进行,随后由两名不知晓治疗组的独立研究者进行人工核查,以确保准确性。
2.10. 新奇物体识别(NOR)
根据各项实验方案,在大鼠完成脑电图/肌电图记录后进行了适应期训练。最初,大鼠有10分钟的时间在尺寸为60×60×40厘米的指定围栏内自由探索。次日,对大鼠进行为期5分钟的训练,使其探索放置在围栏左右两角(距墙壁约10厘米处)的两个立方体物体——一个长方体和一个正方体。此次训练结束后,于2小时后进行记忆测试。测试期间,右侧的正方体物体被替换为一个新型球体物体,具体而言是一个与长方体颜色和高度相匹配的圆锥体。随后,将大鼠重新放入实验舱,使其背部朝向这些物体。在整个实验过程中,使用视频追踪软件连续监测大鼠5分钟内的活动,以评估其与熟悉物体和新物体的互动情况。识别指数(RI)的计算方法为:新物体的探索时间与新物体和熟悉物体总探索时间的比值。
2.11. 莫里斯水迷宫(MWM)测试
MWM装置注满水,并保持在22±2℃的恒定温度。在为期五天的连续训练阶段中,每只大鼠从四个随机起始位置被放入水池。若大鼠在60秒内未能找到水下平台,则将其轻轻引导至平台,并允许其停留10秒以强化空间学习。测试期间,移除平台并进行最终探测测试。在此测试中,每只大鼠被放入迷宫时,其面向水池壁的位置与先前平台的所在位置相对应。到达原始平台位置的潜伏期以及在目标象限停留的时间被记录下来,作为空间记忆表现的衡量指标。
2.12. 原代胶质细胞培养与处理
新生大鼠(出生后第1-3天)用二氧化碳(CO₂)麻醉,随即分离其大脑皮层并置于冰冷的汉克氏培养基(Hank's solution,Gibco™,美国)中。将组织在37°C下用0.25%胰蛋白酶-EDTA(Gibco)消化10分钟。胶质细胞接种于6孔或24孔板中,或接种于预先涂覆了50μg/mL聚-D-赖氨酸(Solarbio,中国)的培养皿中,并使用添加了10%胎牛血清和50U/mL青霉素-链霉素的DMEM(Gibco)进行培养。细胞在含5%CO2的加湿培养箱中于37°C下培养。培养基在24小时后更换,此后每三天更换一次。胶质细胞体外培养14天后,暴露于3%的七氟烷中3小时,该浓度与体内相当。为验证酪氨酸羟化酶(TH)的参与,使用TH特异性抑制剂AMPT开展药理抑制实验。
2.13. siRNA转染
针对DRD2的小干扰RNA(siRNA)由ObiO Technology(上海)有限公司设计并合成。共生成三种不同的siRNA序列,并经过实验筛选以确定最有效的序列,该序列随后用于所有下游实验,并通过Westernblot进行验证。所选siRNA的序列以及相应的阴性对照(NC)siRNA详见补充表1。NC-siRNA的设计确保其在大鼠基因组中不含有预测靶标,用作基线对照。
原代胶质细胞在体外培养第14天(DIV14)进行转染。转染过程中,将siRNA(终浓度为50nM)用Opti-MEMI低血清培养基(Gibco,31985070)稀释,并按照制造商的协议与Lipofectamine 2000(Invitrogen,11668019)混合。随后将siRNA-脂质复合物导入胶质细胞培养物中,并在含5%CO₂的环境中于37°C下培养。6小时后,将转染培养基更换为新鲜的DMEM。转染后48小时收获胶质细胞,通过印迹法评估基因敲低效率。随后利用该经验证的siRNA序列进一步研究,DRD2基因敲低是否能恢复THC对神经炎症的抑制作用。
2.14. 蛋白质印迹分析
海马组织或者胶质细胞RIPA裂解液提取总蛋白;SDS-PAGE电泳,转印至PVDF膜;5%脱脂牛奶TBST室温封闭1 h;4 ℃孵育一抗过夜(TH、NLRP3、DRD1、DRD2、DRD5、GSDMD-NT、cleaved-caspase-1、GAPDH)。次日室温孵育二抗1 h;ECL发光显影;ImageJ软件定量条带灰度。
2.15. 免疫荧光
进行免疫荧光实验时,将20μm脑组织冷冻切片用4%戊二醛固定,用0.1%TritonX-100进行通透处理,并用5%山羊血清进行封闭。为分析NLRP3表达的细胞定位,将切片与抗NLRP3(Adipo Gen,AG-20B-0014-C100)或抗NLRP3(Abclonal, A24294)的一抗,以及针对星形胶质细胞的GFAP(Affinity,BF8023,用于星形胶质细胞)和Iba-1(Abcam,ab178846,用于小胶质细胞)等细胞特异性标志物一同孵育。此外,还使用了抗TH(Proteintech,25859-1-AP)的一抗来评估多巴胺能信号传导。成像使用配备488nm、594nm和647nm激光的共聚焦显微镜进行。为了精确评估NLRP3与胶质细胞标志物之间的空间关系,使用Image J软件进行了共定位分析。通过计算皮尔逊相关系数来定量确定共定位的程度。此外,还分析了平均荧光强度,以比较不同实验组之间的蛋白质表达水平。
2.16. 酶联免疫吸附试验(ELISA)分析
按照制造商的说明,使用免疫检测试剂盒(FineTest,中国)测定了大鼠血清和胶质细胞上清液中IL-1β和iNOS的浓度。同时测定了大鼠脑组织中的多巴胺水平。
2.17. 统计分析
所有数据均以均值±标准差(SD)表示。对于多组间的比较,采用单因素方差分析(ANOVA)进行统计显著性评估,随后进行Tukey事后检验。数据分析采用GraphPad Prism10.1.2版软件进行。p值小于0.05视为具有统计学意义,显著性水平标注如下:p*<0.05、p**<0.01、p***<0.001、p****<0.0001。
结果
3.1. RC可改善“手术+睡眠剥夺”大鼠的认知表现
如实验时间线(图1A)所示,本研究让大鼠经历了一系列行为训练、外科手术、睡眠剥夺及后续干预措施。在迷宫(MWM)训练期间,所有实验组在五天内逃逸潜伏期均呈渐进性改善,该阶段各组间未检测到统计学上的显著差异(图1B)。然而,在测试阶段,“手术+睡眠剥夺”组在目标象限停留的时间比例与对照组相比显著降低,表明其空间记忆受损。剂量为100和200mg/kg的RC给药显著改善了表现,这体现在目标象限停留时间的增加上(图1C)。同样,NOR测试显示“手术+SD”组的识别指数显著降低,而RC治疗以剂量依赖性方式改善了这一指标(图1D)。
3.2. RC可恢复“手术+SD”大鼠受扰的睡眠结构
通过脑电图(EEG)和肌电图(EMG)记录评估了睡眠结构。代表性轨迹显示,与对照组相比,手术+SD组的快速眼动睡眠(REM)减少,而给予200mg/kg剂量的RC后,该情况得到部分恢复(图1E)。定量分析显示,“手术+SD”组的觉醒时间(图1F)和非快速眼动睡眠(NREM)(图1G)显著增加,而快速眼动睡眠(REM)(图1H)明显减少;给予200mg/kg的RC治疗后,睡眠状态的分布得到部分恢复。对警觉状态的堆叠条形图分析(图1I)进一步证实了这些发现,表明RC对睡眠结构具有再平衡作用。
3.3. RC可抑制“手术+SD”大鼠体内的神经炎症标志物
为评估RC的抗炎作用,对血清中IL-1β和iNOS的浓度进行了定量测定。与对照组相比,手术+SD组中这两种标志物的水平均显著升高。RC治疗导致IL-1β(图1J)和iNOS(图1K)的表达呈剂量依赖性下降,表明其能有效抑制神经炎症。
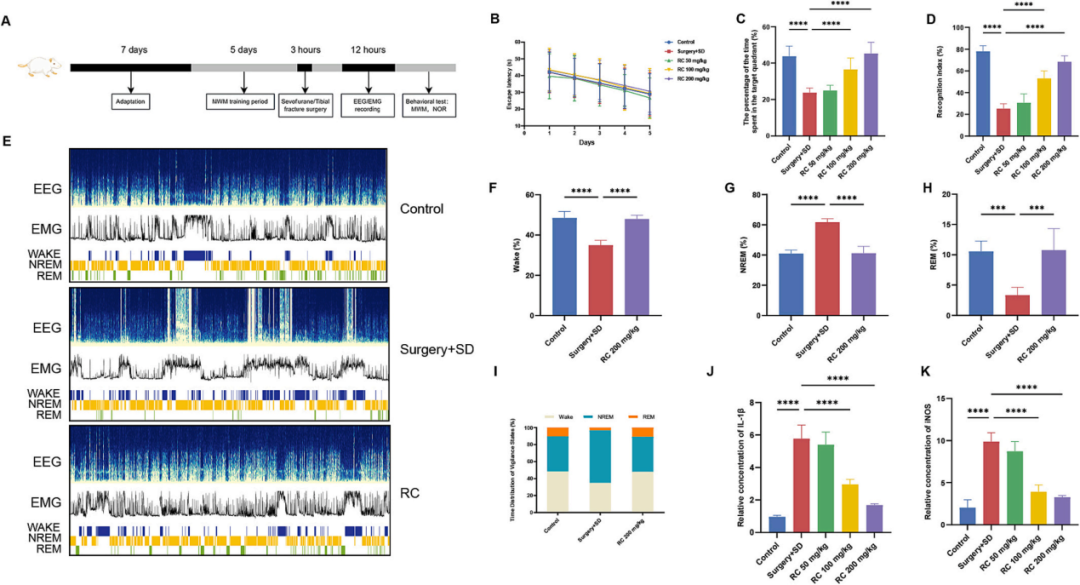
图1. 延胡索(RC)对外科手术+睡眠剥夺(SD)大鼠模型中认知功能、睡眠结构及神经炎症的影响。(A)实验时间线。大鼠先进行7天的适应期,随后进行5天的莫里斯水迷宫(MWM)训练。随后进行胫骨骨折手术(采用七氟醚麻醉),之后进行48小时的睡眠剥夺。随后进行了脑电图(EEG)/肌电图(EMG)记录及行为测试(新物体重认试验[NOR]、MWM)。(B)5天MWM训练期间的逃逸潜伏期。每组n=10。(C)MWM测试期间在目标象限停留的时间百分比。(D)NOR测试中的识别指数。(E)来自对照组、手术+睡眠剥夺组和RC(200mg/kg)组的代表性脑电图、肌电图及睡眠状态记录。(F-H)脑电图/肌电图数据的定量分析,显示清醒状态(F)、非快速眼动(NREM)睡眠(G)和快速眼动(REM)睡眠(H)所占时间百分比。(I)不同组别中警觉状态(清醒、NREM、REM)的时间分布。(J,K)各组大鼠血清中IL-1β(J)和iNOS(K)的相对浓度,显示RC具有剂量依赖性的抗炎作用。每组n=6。所有数据均以均值±标准差表示(B-D组每组n=10;E-I组每组n=5;J、K组每组n=6)。p*<0.05、p**<0.01、p***<0.001、p****<0.0001,由单因素方差分析(ANOVA)结合Tukey事后检验确定,但迷宫(MWM)中的逃逸潜伏期除外,该指标采用重复测量方差分析进行分析。
3.4. 网络药理学和分子对接分析确定TH是RC在POD合并SD中的关键靶点
通过对与POD、睡眠障碍及RC相关的基因集进行全面的整合分析,我们鉴定出17个重叠基因(图2A)。化合物-靶点-疾病相互作用网络阐明了关键生物活性化合物(如四氢柯普西辛和槲皮素)与神经炎症和认知相关靶点的相互作用(图2B)。GO富集分析揭示了其在BP中的多巴胺生物合成过程、CC中的轴突末端以及MF中的四氢生物蝶呤结合中的显著参与(图2C)。此外,KEGG通路富集分析表明,与神经退行性变相关的通路也参与其中(图2D)。基于分子对接分析确定的高排名药物单体和靶蛋白(包括TH、SNCA和PTGS2)的热图及对接评分分析表明,若干RC化合物与靶蛋白之间具有很强的结合亲和力(图2E-F)。通过整合PPI分析、LASSO回归(补充图1)和分子对接的结果,确定TH为关键靶点(图2G)。分子对接进一步证实了TH与四氢黄连碱之间存在稳定的相互作用,突显了其调控潜力(图2H)。
3.5. RC调节TH、多巴胺能信号传导及NLRP3炎性小体的激活
鉴于TH是多巴胺合成的限速酶,我们研究了“手术+SD”及不同剂量RC治疗后,海马中TH和多巴胺受体的表达水平,具体包括DRD1和DRD5(D1R受体的组成部分)以及DRD2(D2R受体的组成部分)。此外,我们还评估了多巴胺含量的变化。Westernblot分析显示,“手术+SD”组中TH和DRD2的表达显著增加,同时NLRP3、裂解型Caspase-1以及gasdermin DN端(GSDMD-NT)的水平也升高,表明炎性小体被激活(图3A-B)。然而,DRD1和DRD5的表达水平未发生改变(补充图2)。相应地,手术+SD组海马体多巴胺浓度显著降低,但在给予RC后得到恢复,尤其在200mg/kg剂量下更为明显(图3C)。免疫荧光染色证实,手术+SD大鼠海马体中TH阳性神经元的数量显著增加,而RC治疗可逆转这一现象。图3D和E分别显示了海马CA3和CA1区域。此外,手术+SD组中NLRP3的表达显著上调,而RC治疗后该表达水平有所减弱,表明炎性小体活化得到缓解(图3F,CA3;图3G,CA1)。
3.6. THC可改善“手术+SD”大鼠的认知表现并使其睡眠结构恢复正常
THC(结构式见图4A)的给药显著缓解了手术和SD诱导的认知障碍。在迷宫学习测试(MWM)中,所有组别均随时间推移表现出学习能力(图4B),且THC治疗显著提高了探测试验中目标象限的停留时间百分比(图4C)。在NOR测试中,与“手术+SD”组相比,接受THC治疗的大鼠表现出更高的RI值(图4D)。脑电图(EEG)和肌电图(EMG)记录显示,THC显著逆转了快速眼动睡眠(REM)的减少,缓解了“手术+SD”诱导的觉醒时间延长和非快速眼动睡眠(NREM)持续时间增加,最终恢复了睡眠结构(图4E-I)。
3.7. THC抑制神经炎症、NLRP3炎性小体活化,并维持多巴胺能信号传导
THC显著降低了血清中IL-1β和iNOS的水平,同时提高了多巴胺浓度(图5A-C),表明其具有抗炎和恢复多巴胺能功能的作用。Westernblot分析显示,THC抑制了NLRP3、裂解型半胱天冬酶-1和GSDMD-NT的表达,同时维持了TH和DRD2的蛋白水平(图5D-I),且对DRD1和DRD5的表达无显著影响(补充图3)。免疫荧光染色进一步证实,在接受THC治疗的“手术+SD”大鼠的海马CA3和CA1区域中,TH表达得到了恢复(图5J-K)。
为进一步探究NLRP3的细胞定位,我们对NLRP3与小胶质细胞标志物Iba-1及星形胶质细胞标志物GFAP进行了三重免疫荧光染色。在“手术+SD”组大鼠的CA3区域,NLRP3与Iba-1和GFAP均呈现广泛的空间重叠(图5L-N)。皮尔逊相关系数分析显示,在“手术+SD”组中,CA3区域NLRP3与小胶质细胞及星形胶质细胞的皮尔逊相关系数为0.86。此外,荧光强度分析表明,THC处理显著恢复了CA3区域NLRP3蛋白的表达水平(图5O)。同样,在CA1区域,NLRP3与小胶质细胞和星形胶质细胞显示出显著的共定位,皮尔逊相关系数为0.84(图5P-R),且THC治疗也恢复了该区域的NLRP3表达(图5S)。这些结果表明,THC的神经保护作用与胶质细胞密切相关,具体而言,是通过抑制小胶质细胞和星形胶质细胞中NLRP3炎性小体的活化来恢复多巴胺系统的稳态。
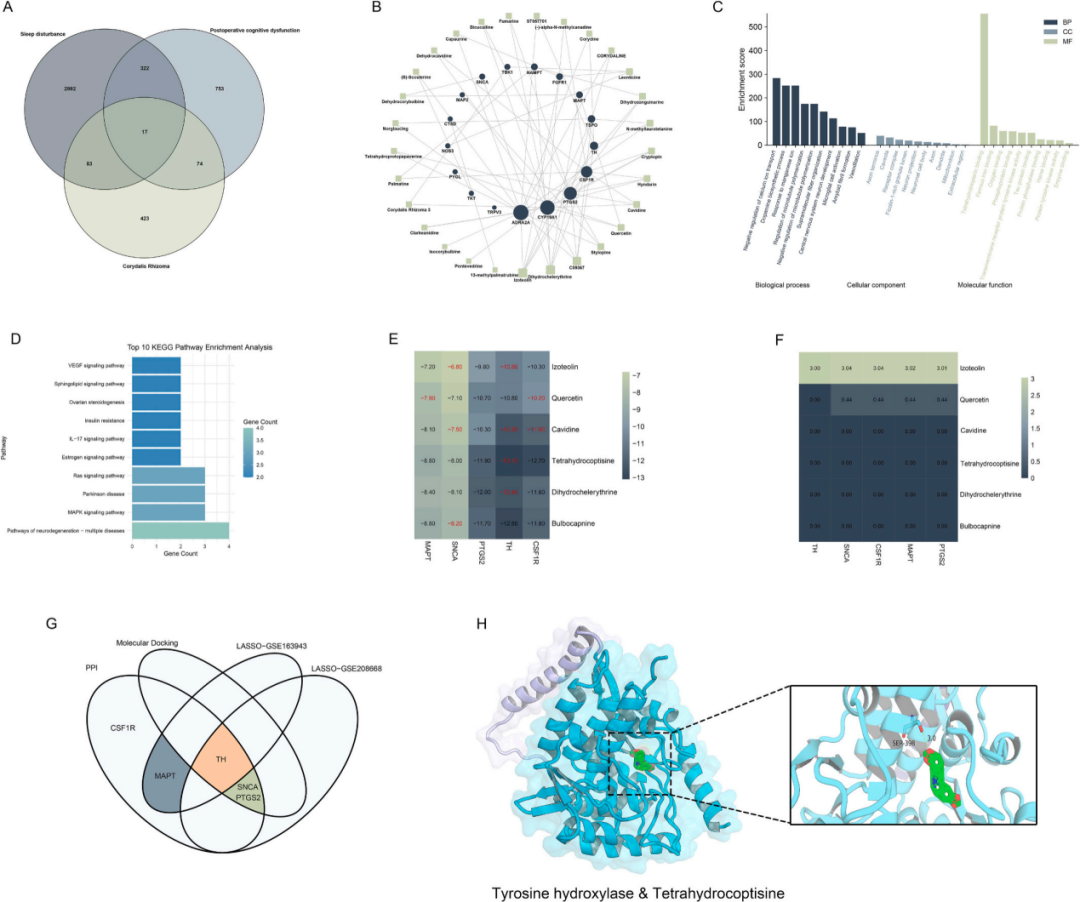
图2. 识别RC用于治疗伴有睡眠障碍的POD的关键靶点和生物活性化合物。
(A)维恩图显示了与睡眠障碍、POD和RC相关的重叠基因。(B)通过Cytoscape构建的药物-化合物-靶点-疾病相互作用网络。(C)基因本体论(GO)富集分析显示了富集程度最高的生物过程(BP)、细胞组分(CC)和分子功能(MF)。(D)KEGG通路富集分析显示了前10个信号通路,包括神经退行性变。(E)通过分子对接,针对网络药理学识别的关键靶点,RC中六种生物活性化合物的结合能(kcal/mol)热图。(F)关键靶点与候选化合物的均方根偏差(RMSD)值。(G)整合PPI分析、LASSO回归和分子对接结果的维恩图。TH被鉴定为核心靶点。(H)四氢柯普西辛(THC)与TH的分子对接,展示了三维空间中的结合相互作用。相互作用网络数据采用CytoHubba算法进行分析,结合能通过AutoDock Vina计算得出。
3.8. THC可减轻体外实验中七氟烷诱导的胶质细胞炎症
为了进一步阐明THC的作用机制,将暴露于3%七氟烷的原代胶质细胞用低剂量(1μg/mL)和高剂量(2μg/mL)THC预处理(图6A)。ELISA定量分析显示,THC预处理以剂量依赖性方式降低了IL-1β和iNOS的水平(图6B-C),同时Westernblot分析表明,THC预处理还抑制了七氟烷诱导的NLRP3和DRD2过表达(图6D-G)。免疫荧光分析证实了这些发现,结果表明THC给药后TH表达和NLRP3水平均有所降低(图6H-I)。
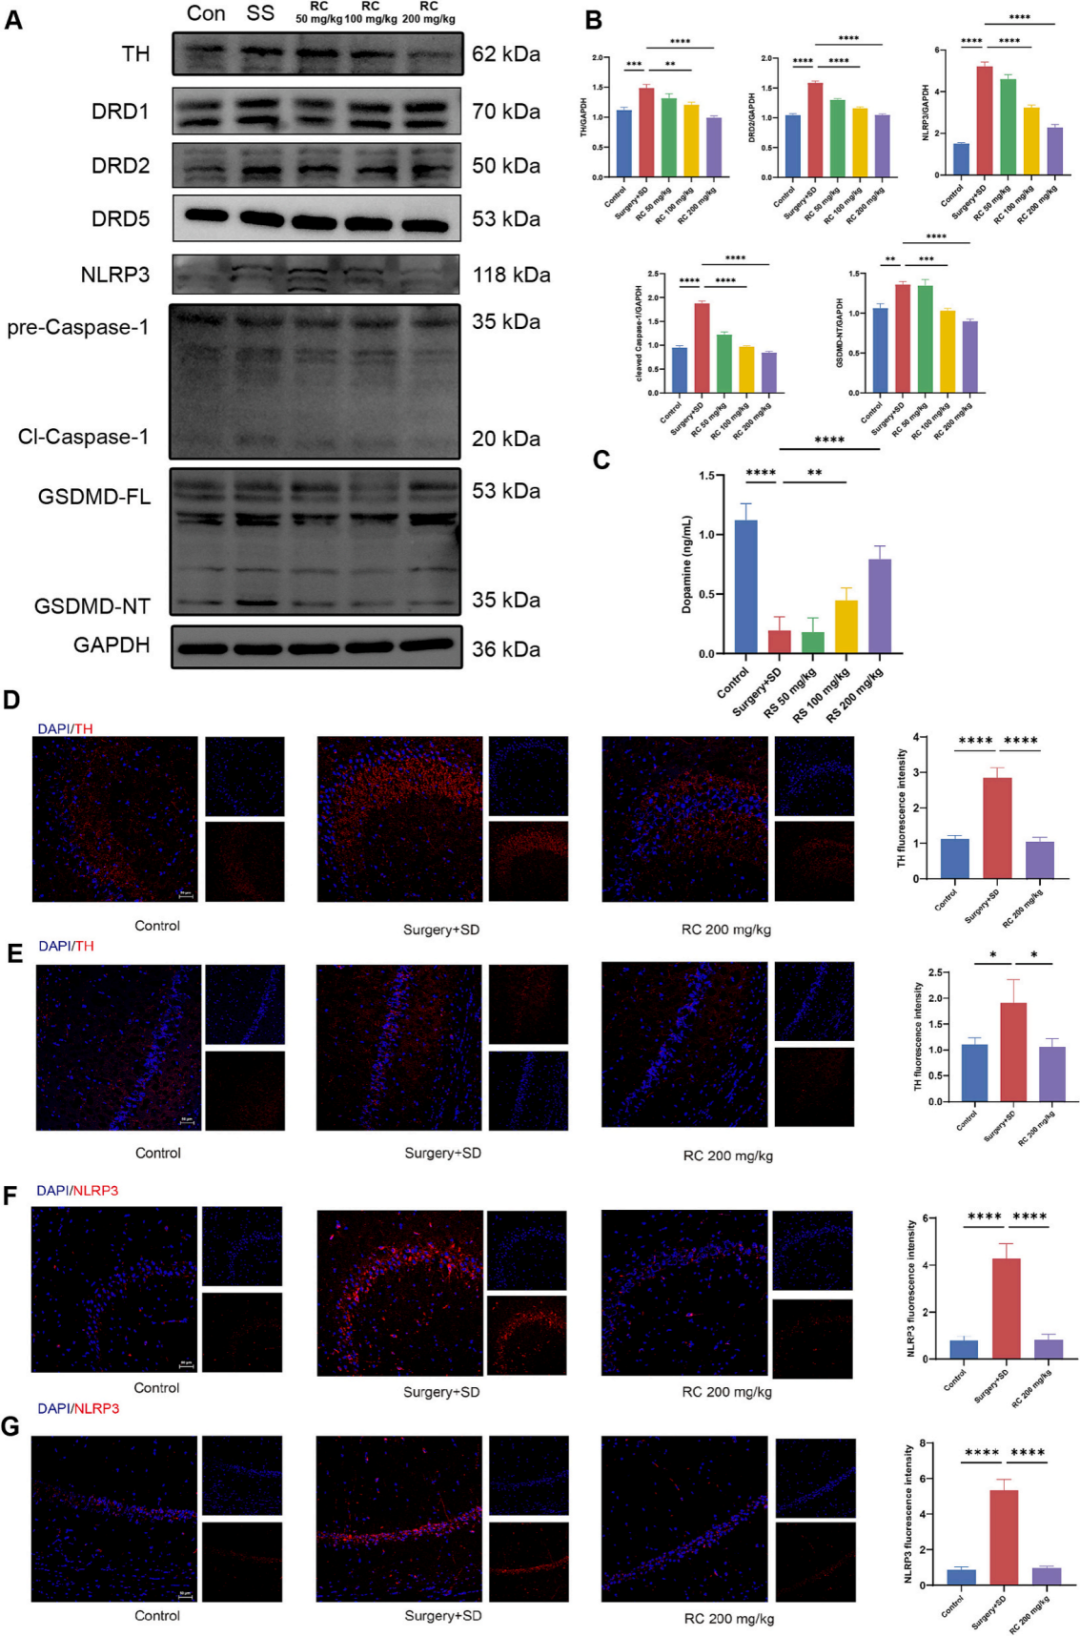
图3. RC调节“手术+应激性抑郁”大鼠体内的TH相关信号传导和炎性小体活化。
(A)Westernblot显示海马组织中TH、多巴胺受体(DRD1、DRD2、DRD5)、NLRP3、Caspase-1(全长和裂解型)以及GSDMD(FL和NT)的表达情况。(B)对(A)中TH、DRD2、NLRP3、裂解型Caspase-1和GSDMD-NT表达量的定量分析。(C)酶联免疫吸附试验(ELISA)结果显示大鼠海马中的多巴胺浓度。(D-E)不同处理条件下海马CA3区(D)和CA1区(E)TH表达的免疫荧光图像及定量分析。使用DAPI进行细胞核反染。比例尺=50μm。(F-G)CA3(F)和CA1(G)区域NLRP3的免疫荧光染色,显示“手术+SD”组中NLRP3被激活,而RC治疗后则被抑制。使用DAPI进行细胞核反染。比例尺=50μm。所有数据均以均值±标准差表示(A、B、D-G组每组n=5;C组每组n=6)。p*<0.05、p**<0.01、p***<0.001、p****<0.0001,由单因素方差分析(ANOVA)结合Tukey事后检验确定。
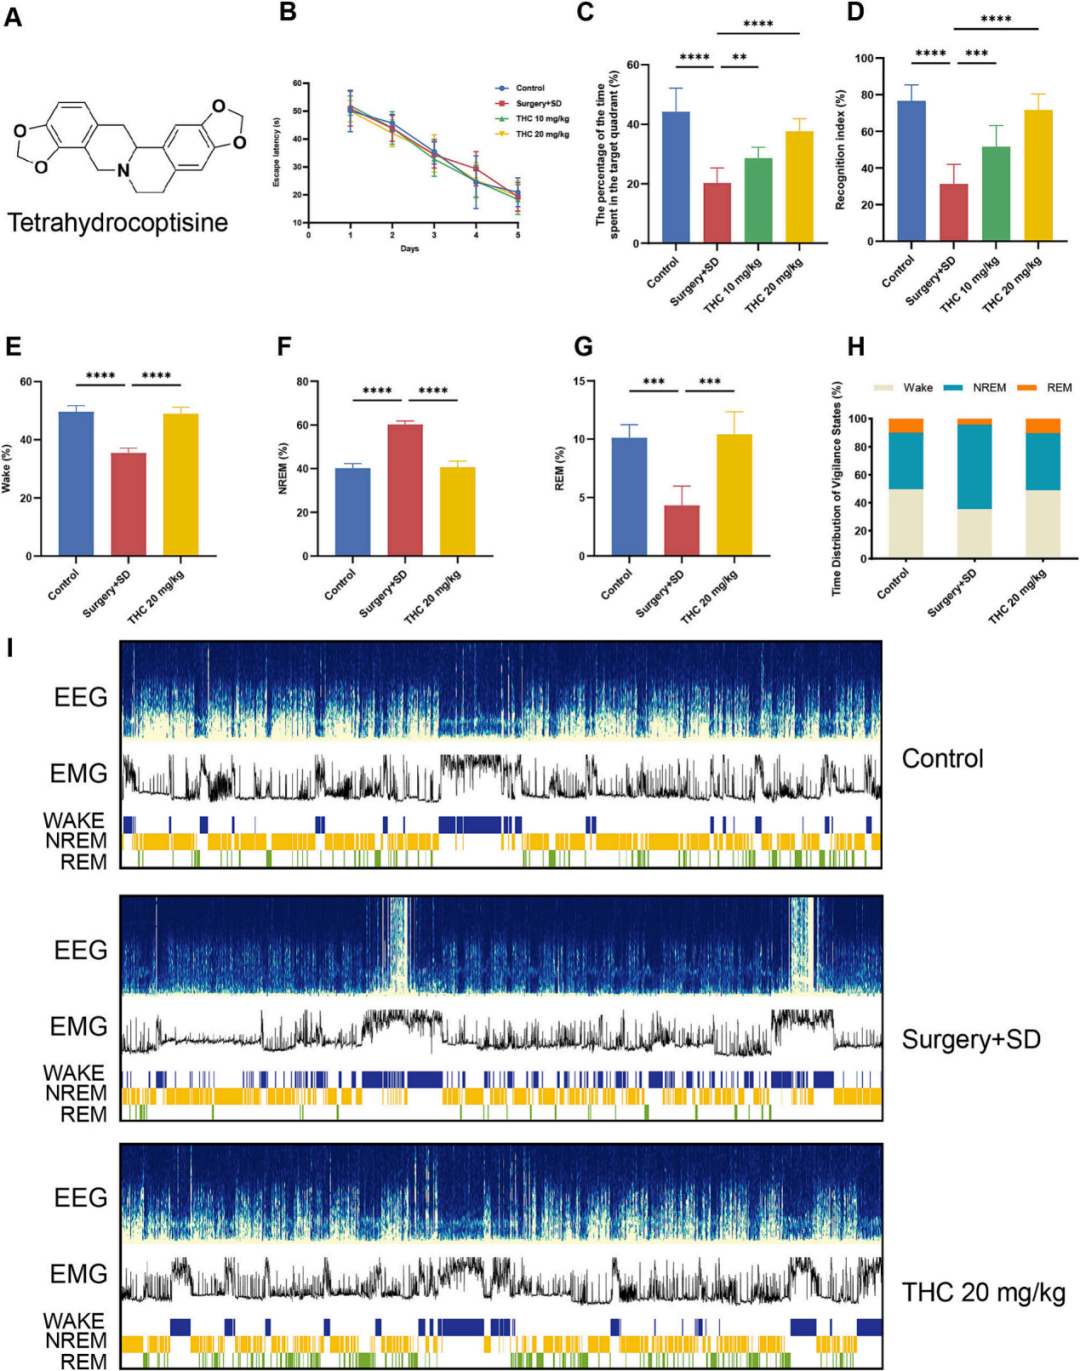
图4. THC可改善麻醉/手术后伴有睡眠剥夺的认知功能并恢复睡眠结构。
(A)THC的化学结构。(B)5天训练期内MWM测试中的逃逸潜伏期。(C)测试期内位于目标象限的时间占比。(D)NOR测试中的RI值。(E-G)睡眠剥夺后最初24小时内清醒、非快速眼动睡眠和快速眼动睡眠的时间占比。(H)各组警觉状态的时间分布。(I)对照组、手术+睡眠剥夺组和THC(20mg/kg)组的代表性脑电图(EEG)、肌电图(EMG)及睡眠状态记录。所有数据均以均值±标准差表示(B-D组每组n=10;E-I组每组n=5)。p*<0.05、p**<0.01、p***<0.001、p****<0.0001,由单因素方差分析(ANOVA)结合Tukey事后检验确定;但迷宫(MWM)中的逃逸潜伏期除外,该指标采用重复测量方差分析进行分析。
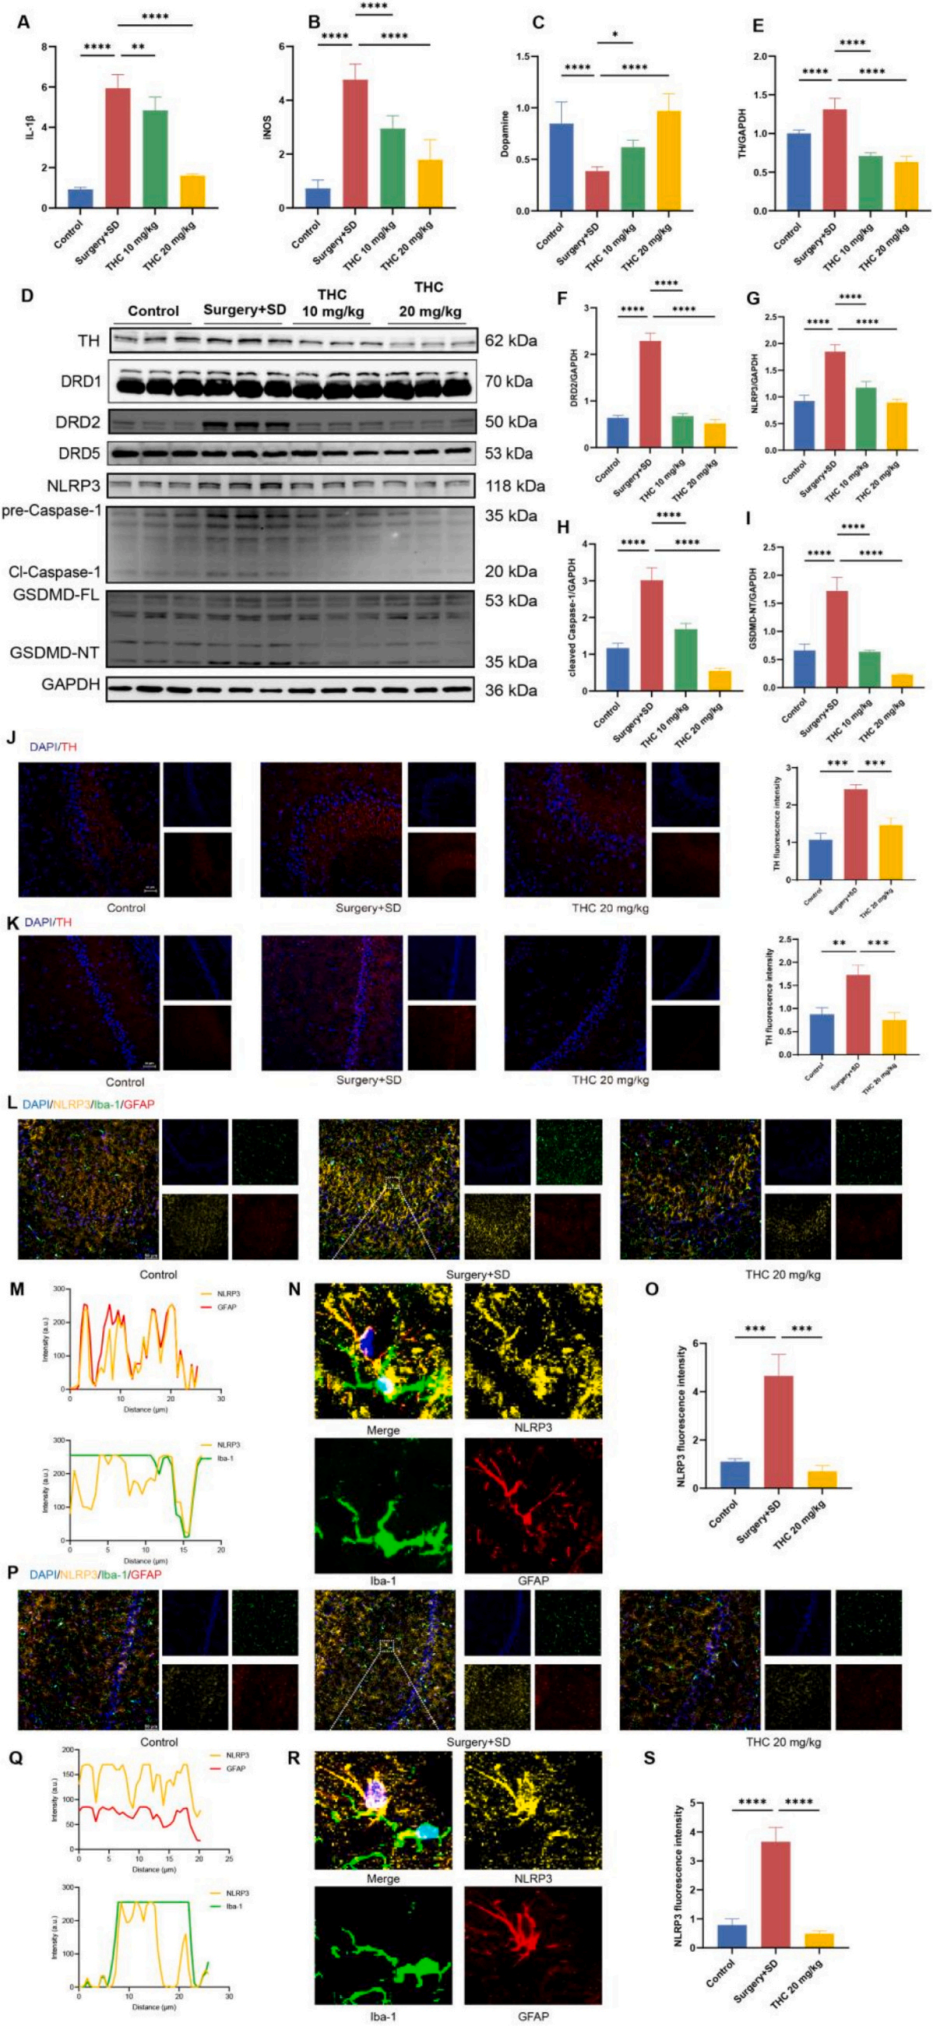
图5. THC可恢复手术和睡眠剥夺后与TH相关的信号传导,并抑制NLRP3炎性小体的激活。(A-C)大鼠血清中IL-1β、iNOS和多巴胺的水平。(D)各组大鼠海马中TH、多巴胺受体(DRD1、DRD2、DRD5)、NLRP3、半胱天冬酶-1(全长和裂解型)以及GSDMD(全长和NT型)蛋白的表达情况。(E-I)对图(D)中TH、DRD2、NLRP3、裂解型半胱天冬酶-1和GSDMD-NT的表达进行定量分析(D)中TH、DRD2、NLRP3、裂解型caspase-1及GSDMD-NT表达量的定量分析。(J-K)海马CA3和CA1区域TH免疫荧光的代表性图像及定量分析。使用DAPI进行细胞核反染。比例尺=50μm。(L-M)海马CA3和CA1区域NLRP3免疫荧光的代表性图像及定量分析。使用DAPI进行细胞核反染。比例尺=50μm。所有数据均以均值±标准差表示(A-C组每组n=6┤;D-M组每组n=5)。p*<0.05、p**<0.01、p***<0.001、p****<0.0001,由单因素方差分析(ANOVA)结合Tukey事后检验确定。
3.9. THC通过TH/DRD2信号通路抑制NLRP3炎性小体的激活
为进一步证实TH在THC抗炎作用中的参与,使用TH的特异性抑制剂α-甲基-对-酪氨酸(AMPT)进行了拯救实验。如图7A所示,与对照组相比,七氟烷显著增加了胶质细胞中TH的表达,而THC处理则显著降低了其表达。然而,与AMPT联合处理(THC+AMPT)消除了这种降低作用,并恢复了TH的表达(图7B)。与之一致的是,抑制TH部分逆转了THC对NLRP3活化的抑制作用(图7C),表明TH的活性是THC发挥抗炎作用所必需的。
考虑到TH在多巴胺合成中起限速酶的作用,我们进一步考察了其下游受体DRD2是否在这些观察到的效应中起中介作用。首先,我们验证了三种针对DRD2的不同小干扰RNA(siRNA)序列的敲低效率。如图7D-E所示,所有siRNA构建体均显著降低了DRD2蛋白水平,其中si-DRD2-1的效率最高,因此被选用于后续实验。重要的是,尽管THC处理有效缓解了七氟烷诱导的NLRP3炎性小体活化并降低了DRD2表达,但这些效应在DRD2敲低后显著减弱(图7F-H)。具体而言,在Sevo+THC+si-DRD2组中,THC对NLRP3的抑制作用部分被逆转,导致NLRP3蛋白水平恢复(图7H)。综上所述,这些发现表明THC通过调节TH/DRD2信号通路发挥其抗炎作用,从而抑制NLRP3炎性小体的激活。
讨论
术后认知障碍(POD)和睡眠障碍会显著阻碍患者的快速康复和长期生活质量。然而,其潜在的病理生理机制仍未被充分理解,目前也缺乏有效的治疗策略。本研究为POD合并睡眠障碍的病理生理机制提供了新的见解,并突显了RC及其生物活性化合物THC的治疗潜力。通过采用结合麻醉和手术的临床相关大鼠模型,我们证明RC能显著缓解术后认知障碍和睡眠结构紊乱。这些神经保护作用很可能通过调节TH-DRD2信号通路和抑制NLRP3炎性小体的激活来介导,从而减轻神经炎症反应。
尽管专门探讨POD与术后睡眠障碍之间关系的大规模前瞻性研究尚有限,但越来越多的证据表明,这两种状况在围手术期常同时存在,并可能对彼此产生双向影响。已有研究表明,睡眠剥夺会加剧神经炎症、损害突触可塑性并扰乱脑淋巴清除机制,这些因素均会导致认知功能下降。反之,认知功能障碍可能会干扰昼夜节律调节和睡眠结构。尽管存在这种相互关系,但大多数临床前研究采用的都是单因素模型,这些模型可能无法充分反映围手术期病理生理学的复杂性。为弥补这一缺口,我们开发了一种多因素啮齿类动物模型,该模型将胫骨骨折手术与短期睡眠剥夺相结合,符合2024年欧洲麻醉与重症监护医学学会(ESAICM)关于术后谵妄建模的指南。该方法更准确地反映了外科患者所面临的临床应激因素,从而增强了本研究结果的转化相关性,并为潜在干预措施的临床前评估提供了坚实平台。
本研究阐明了中药成分RC药理作用的物质基础。RC因其据称具有促进血液循环缓解疼痛的功效,在传统医学中被广泛应用。然而,其活性成分和作用机制至今仍未完全明确。在本研究中,虽然网络药理学鉴定出了多种候选化合物,但基于严格的多步骤筛选流程,THC被优先选定进行实验验证。在分子对接模拟中,THC与我们鉴定的枢纽基因(如TH)表现出最稳定的结合亲和力(最低结合能),并在PPI网络拓扑分析中展现出较高的中心性。THC作为RC的重要成分,已被证实可缓解LPS介导的色氨酸-西纳林代谢通路失衡,从而减轻神经炎症。此外,THC还能减轻LPS诱导的全身性炎症反应和急性肺损伤,抑制IL-6和TNF-α等炎症因子的产生,降低p38MAPK的磷酸化水平,并抑制NF-κB的活化。通过整合网络药理学与实验验证,我们确定THC是RC中负责改善“手术+睡眠剥夺”大鼠模型中认知功能障碍和睡眠障碍的主要活性单体。需要特别指出的是,尽管THC是主要的生物活性驱动因子,但RC的整体疗效可能还涉及与其他生物碱(如卡维定或二氢切莱里特林)的协同作用,这些成分可能通过互补途径贡献其镇静或镇痛特性。我们的研究结果证实,THC通过TH-DRD2通路发挥作用,从而为未来靶向药物开发和单体提取提供了明确方向。
在机制研究中,我们确定TH是RC及其活性成分THC发挥神经保护作用的关键分子靶点。TH作为多巴胺生物合成的限速酶,对于维持前额叶皮层和边缘系统内多巴胺的稳态至关重要——这些区域对认知过程和睡眠-觉醒周期的调节起着核心作用。多巴胺能系统功能障碍被广泛认为是导致认知衰退[37,38]和睡眠障碍发病机制的重要因素。海马依赖性空间信息的处理与外侧蚁桥(LHb)密切相关,该脑区参与行为决策,整合来自前额叶皮层的输入,并与腹侧被盖区(VTA)形成双向连接。腹侧被盖区(VTA)是多巴胺能投射的主要来源,通过与外侧脑桥核(LHb)的连接,在调节海马依赖性认知功能方面发挥着关键作用。重要的是,外侧脑桥核(LHb)作为连接前脑和中脑的中央枢纽,协调着包括认知、睡眠和疼痛调节在内的一系列生理过程。
研究表明,在生理条件下,基底外侧杏仁核(BLA)中多巴胺的释放可通过激活BLA-DRD2+神经元来促进快速眼动睡眠(REM)。Xin等人揭示,POCD小鼠表现出IL-1β和IL-6水平升高、VTA内神经元凋亡增加、多巴胺能神经元数量减少以及树突棘密度降低,从而强调了神经炎症与多巴胺能功能障碍之间的联系。此外,DRD2在非快速眼动(NREM)和快速眼动(REM)睡眠的调节中均发挥作用,D2受体激动剂会诱导剂量依赖性的双相效应:低剂量可增强REM和NREM睡眠,而高剂量则会产生抑制作用。在本研究中,发现麻醉和手术等刺激会升高神经炎症水平,进而导致多巴胺释放减少、快速眼动睡眠缩短,以及TH表达的代偿性增加。SD大鼠中观察到的蛋白质表达增加与神经递质水平降低之间的矛盾,很可能表明存在一种稳态反馈机制。多巴胺释放的急性减少可能会引发对限速酶TH的代偿性上调。然而,TH蛋白的总体表达并不一定与其功能性酶活性或多巴胺代谢率相一致,后者可能会因神经炎症诱导的氧化应激而受到显著损害。此外,DRD2的上调很可能意味着一种补偿性受体适应,即通过增加受体密度来维持信号传导效率,以应对慢性配体缺乏。通过缓解神经炎症,THC有效促进了多巴胺水平的恢复,从而降低了TH-DRD2轴的代偿需求,使其恢复到生理状态。相反,观察到RC通过抑制神经炎症增强了TH活性,导致TH表达下降以及多巴胺D2受体下游表达发生改变。最终,这些变化与“手术+睡眠剥夺”组大鼠认知功能和睡眠结构的改善相关。
重要的是,我们进一步证实,RC和THC均能抑制NLRP3炎性小体的活化,这体现在下游炎症效应分子(包括裂解型caspase-1和GSDMD-NT)表达的降低上。活化的caspase-1会促进IL-1β和IL-18等促炎细胞因子的成熟和分泌,并诱导GSDMD依赖性的膜孔形成,最终导致焦亡细胞死亡并加剧神经损伤。RC和THC对裂解型caspase-1和GSDMD-NT的抑制作用,表明它们具有减轻炎性小体介导的焦亡并限制神经炎症扩散的潜力。这些效应为观察到的认知功能和睡眠结构改善提供了关键的机制依据。
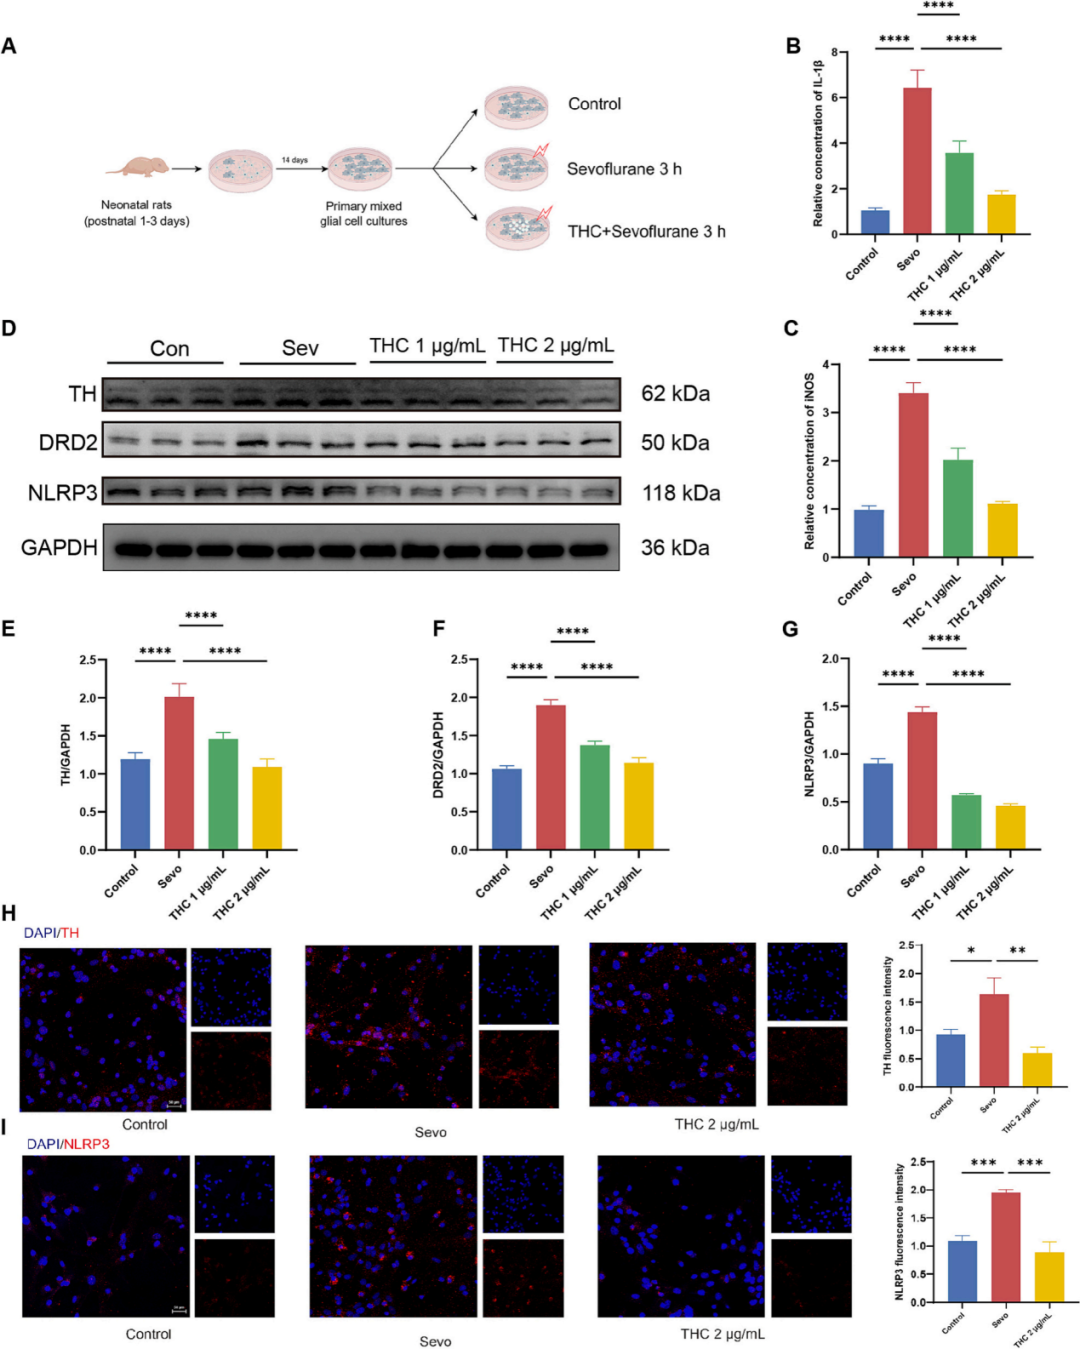
图6. THC可缓解原代胶质细胞培养中七氟烷诱导的炎症。
(A)实验设计示意图:将新生大鼠来源的原代胶质细胞培养物培养2周后,分别给予或不给予四氢大麻酚(THC)处理,并暴露于七氟烷中。(B-C)细胞培养上清液中IL-1β和iNOS的相对浓度,每组n=5。(D)经七氟烷和四氢大麻酚处理后,原代胶质细胞培养物中TH、DRD2和NLRP3的表达情况,每组n=5。(E-G)以GAPDH为内参对TH、DRD2和NLRP3表达进行定量分析。(H-I)原代胶质细胞培养物中TH和NLRP3的免疫荧光染色及定量分析。使用DAPI进行核反相染色。比例尺=50μm。所有数据均为n=5次独立实验的均值±标准差。p*<0.05、p**<0.01、p***<0.001、p****<0.0001,由单因素方差分析(ANOVA)结合Tukey事后检验确定。
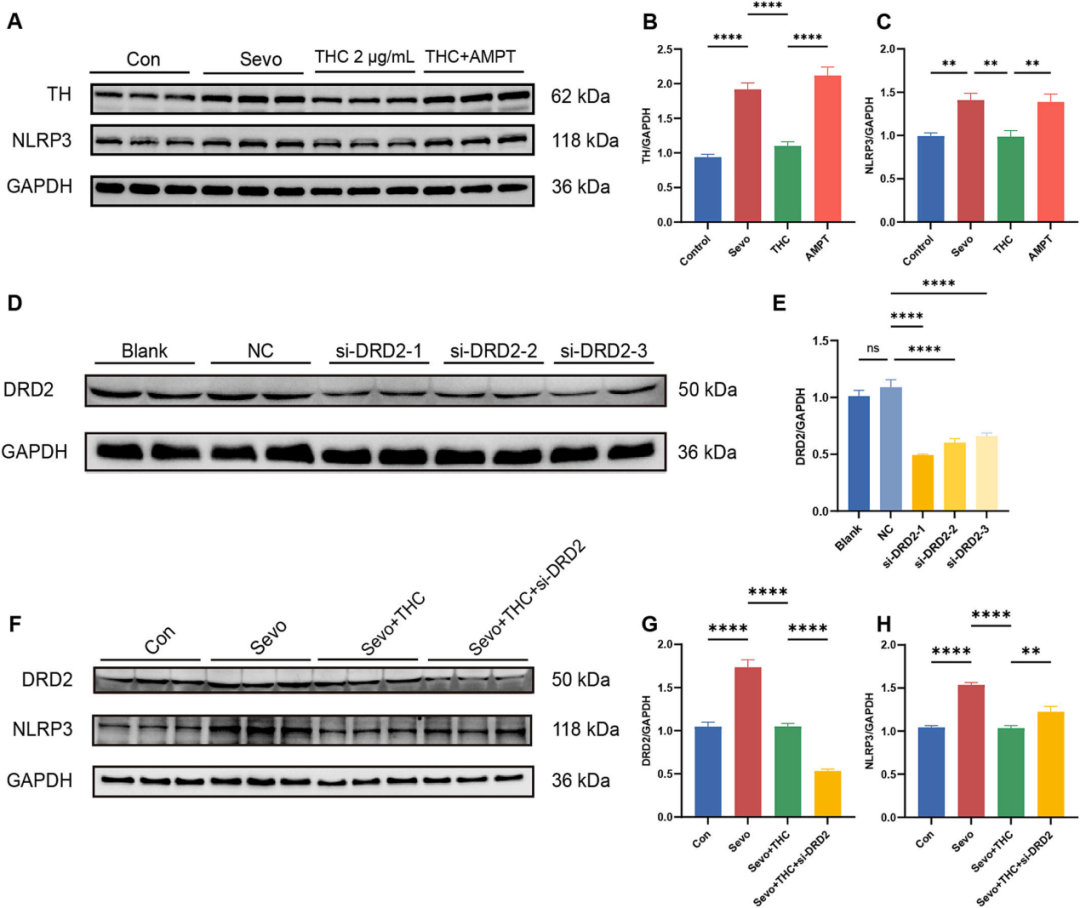
图7. THC通过TH/DRD2信号通路抑制NLRP3炎性小体的激活。
(A)经七氟烷(Sevo)、THC(2μg/mL)或TH抑制剂AMPT处理的原代胶质细胞培养物中TH和NLRP3表达的Westernblot分析(每组n=5)。(B,C)以GAPDH为内参对TH(B)和NLRP3(C)蛋白水平进行定量分析。(D)采用三种不同的siRNA序列在胶质细胞中验证DRD2敲低效率(每组n=4)。(E)DRD2蛋白水平定量分析显示,与NC组相比,si-DRD2组(尤其是si-DRD2-1组)的表达显著降低。(F)Westernblot结果显示,经THC处理和DRD2敲低后,Sevo暴露细胞中DRD2和NLRP3的表达情况(每组n=5)。(G,H)不同处理组中DRD2(G)和NLRP3(H)表达量的定量分析。数据以均值±标准差表示。显著性水平按p*<0.05、p**<0.01、p***<0.001和p****<0.0001标注,由单因素方差分析(ANOVA)结合Tukey事后检验确定。
包括小胶质细胞和星形胶质细胞在内的胶质细胞,是认知相关疾病中神经炎症不可或缺的组成部分。小胶质细胞作为中枢神经系统的驻留免疫细胞,既能启动保护性免疫应答,又在引发神经炎症方面起着关键作用。当暴露于麻醉和手术创伤等炎症刺激时,小胶质细胞会被激活并分泌促炎介质,这可能加剧神经元损伤。另一方面,星形胶质细胞对于维持神经元稳态、调节突触传递以及支持神经元代谢和营养信号传导至关重要。然而,麻醉和外科手术会诱导星形胶质细胞发生形态和功能上的改变,导致突触可塑性受损、神经血管耦合紊乱以及促炎细胞因子的释放增加,所有这些因素均会加剧中枢炎症。在本研究中,我们利用原代混合胶质细胞培养体系,探索了THC抗炎作用背后的细胞机制。研究结果表明,THC显著减轻了七氟烷暴露诱导的炎性细胞因子升高,从而在细胞水平上进一步证实了RC和THC的抗炎特性。
本研究存在若干局限性。首先,尽管“麻醉/手术加睡眠剥夺”模型增强了临床相关性,但未能完全再现围手术期遇到的复杂且多维度的应激因素,例如潜在的术后疼痛或环境干扰。其次,RC/THC可能通过其他神经递质系统(如胆碱能、GABA能)影响认知和睡眠,这需要进一步研究。第三,尽管采用了脑电图(EEG)和肌电图(EMG)来评估睡眠结构,但其对长期昼夜节律的影响仍未充分了解。第四,认知恢复是一个长期过程,但本研究仅关注短期结果。第五,THC在人体内的药代动力学、安全性及临床疗效尚需进一步探索。最后,本研究仅使用了雄性大鼠。鉴于术后谵妄和神经炎症中已知的性别差异,未纳入雌性受试者可能限制了本研究结果的普适性。未来需要开展涉及两性受试者的研究,以验证THC的治疗功效。
总而言之,本研究突显了TH在伴有睡眠障碍的术后谵妄发病机制中的关键作用,并提供了实验证据,支持RC及其活性成分THC在改善这些症状方面的治疗潜力。这些发现为开发新型围术期神经保护策略提供了重要的理论支持和转化前景,特别是针对神经炎症和神经递质通路的药理学干预措施。
结论
RC及其活性成分THC显著缓解了术后谵妄(POD)合并睡眠障碍(SD)所导致的认知缺陷和睡眠障碍,这很可能是通过调节TH活性并抑制NLRP3炎性小体的活化实现的。这些结果提供了机制见解和临床前证据,支持开发针对神经炎症和神经递质双重通路的新型围手术期神经保护策略。
中西合璧述评
该研究构建手术联合睡眠剥夺的大鼠模型,证实延胡索及其活性成分四氢黄连碱可缓解术后谵妄伴随的认知损害与睡眠紊乱;机制上四氢黄连碱通过 TH/DRD2 通路抑制胶质细胞 NLRP3 炎症小体活化,减轻神经炎症与细胞焦亡,为围手术期神经保护提供新靶点和候选药物,但转化应用存在距离,缺少四氢黄连碱血脑屏障透过、体内药代动力学、毒性安全性数据,全部为细胞、动物实验,尚无人体研究,距离临床应用还有较大差距。