深度解析医学证据,lxfs.net为你支撑决策
近年来,腺相关病毒(AAV)因其良好的组织亲和性、非致病特性及稳定的转基因表达能力,成为基因治疗领域最具潜力的载体之一[1-3]。自2012年首款AAV基因治疗药物Glybera(治疗脂蛋白脂酶缺乏症)获得欧盟药品管理局(EMA)批准以来,全球上市包括Zolgensma[2019年美国食品药品监督管理局(FDA)批准用于脊髓性肌萎缩症]和Luxturna(2017年FDA批准用于RPE65突变相关视网膜病变)在内的多款AAV基因治疗药物[4]。
随着衣壳工程改造和规模化生产工艺的突破,AAV基因治疗药物已从单基因遗传病(如血友病、杜氏肌营养不良)向复杂疾病领域拓展——目前针对阿尔茨海默病、帕金森病等神经退行性疾病,以及实体瘤治疗的临床研究管线已呈现快速扩展态势[5-7]。然而,随着研究深入和临床应用扩大,其剂量依赖性免疫原性、器官特异性毒性和潜在基因组整合风险等安全性问题逐渐显现,仅2020—2023年间就有23项AAV相关临床试验因安全性问题被暂停(国家临床试验NCT追踪数据),这凸显出系统性毒性研究的重要性和紧迫性[8]。
多项临床前及临床研究证实,AAV介导的基因治疗可能引发多种复杂的毒性反应[1,9-10]。常见毒性包括肝功能损伤、神经系统损害、补体激活引发的免疫反应和潜在的基因组整合致癌风险等[11]。这些毒性表现的产生不仅与AAV衣壳蛋白(capsid)的免疫原性相关,还受到载体基因组结构、启动子选择、给药剂量及个体免疫差异等因素影响。此外,由于AAV的毒性机制为多因素交互作用的结果,临床前动物模型的异质性以及缺乏敏感、特异性的毒性检测指标,限制了对其潜在风险的全面预测与干预[12-14]。
2024年12月,国家药品监督管理局药品审评中心发布《腺相关病毒载体基因治疗产品非临床研究技术指导原则》[15],详细规定了AAV载体基因治疗产品的非临床安全性评价指标和实验指导,但现有毒性评价技术方法仍需改进完善。因此,亟需建立系统性研究体系以阐明AAV相关毒性的生物学机制,并构建高效、可转化的毒性评估平台。
本文系统梳理了AAV载体药物在毒性机制、检测技术及缓解策略方面的最新研究进展,通过构建“载体设计-毒性发生-动态监测-主动干预”四维分析框架的全生命周期毒理学研究体系(图1),深度解析AAV载体药物安全性研究的核心问题,以期为AAV载体药物的安全性评估、产品设计优化及监管策略制订提供理论支持与方法参考。
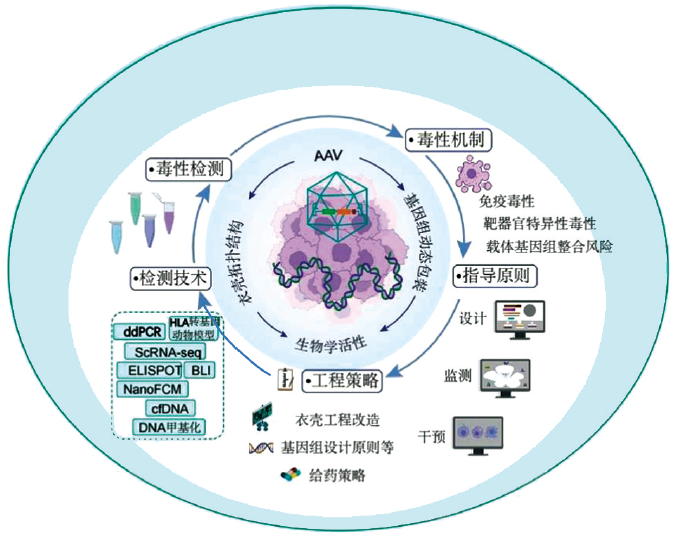
图1 AAV载体毒性控制策略
ddPCR:微滴式数字PCR;HLA:人类白细胞抗原;ELISPOT:酶联免疫斑点试验;BLI:生物发光成像;cfDNA:细胞游离DNA;AAV:腺相关病毒
1 AAV载体系统的生物学特性
基因治疗药物的生物分布特征和潜在毒性风险主要由其衣壳拓扑结构与基因组动态包装机制共同决定。基因组动态包装机制是指AAV单链DNA在病毒复制过程中,通过一系列精密的分子相互作用、构象变化和能量驱动过程,被选择性包裹入衣壳的复杂生物学过程。该机制涉及病毒蛋白、基因组元件及辅助因子的协同调控,呈现为“识别-转运-泵入-闭合”的连续性动态步骤。
深入解析AAV载体结构与功能的关系网络,可为后续毒理学研究和临床风险评估提供重要的理论基础。需要特别关注的关键元件包括:启动子、外源治疗基因、增强子以及反向末端重复序列(ITRs)等。这些元件的选择和优化直接影响基因治疗药物的安全性和有效性。
1.1 血清型多样性与组织嗜性
AAV共有12种天然血清型及多种人工改造亚型,其中以AAV2、AAV5、AAV8和AAV9等在临床研究中应用较广。不同血清型的组织嗜性(tropism)主要取决于衣壳蛋白与宿主细胞表面受体的特异性结合[16]。例如,AAV9因其能够跨越血脑屏障,在神经系统疾病治疗中呈现高效的转导能力,而AAV8则在肝脏转导效率方面具有突出表现。这种组织特异性差异不仅为靶向治疗提供了可能,同时也对药物毒性作用部位及强度产生重要影响。
值得注意的是,由于人群中普遍存在自然感染史,部分个体可能已产生针对特定血清型的中和抗体(NAbs),影响AAV转导效率,甚至诱导免疫相关毒性反应[17-18]]。因此,在临床应用中,血清型的选择需综合考虑患者的免疫背景、靶器官特性以及适应证特点,建议通过预筛检测调整个体化用药方案。
1.2 衣壳工程化改造与生物学行为调控
为克服天然血清型在组织分布、免疫原性或载体稳定性方面的局限性,近年来广泛采用衣壳工程化技术对AAV进行优化。通过定向进化、结构域交换、点突变、糖基化修饰等手段,研究人员能够精确调控AAV衣壳对靶细胞的亲和力及免疫系统识别能力[14]。如编码病毒蛋白1(VP1)的氨基酸序列的关键位点突变可显著降低T细胞对衣壳的识别能力,同时保持病毒的转导效率[19]。
基于结构信息进行的受体结合位点“遮蔽”或修饰,亦可降低非靶组织摄取,从而改善载体分布特征。然而,改造过程中的功能代偿效应不容忽视,例如AAV2.7m8突变体虽显著提升了视网膜下腔的扩散效率,却意外激活了小胶质细胞的Toll样受体9(TLR9)信号通路,导致白细胞介素(IL)-6水平升高3.8倍[20]。这提示衣壳工程化改造需建立多参数优化模型,在转导效率、免疫原性和药物浓度-时间曲线下面积(AUC)之间寻求最优平衡点,以确保其安全有效[21]。
1.3 载体基因组设计原则
AAV载体的基因组通常由两侧ITRs包裹的表达盒构成,该表达盒包含启动子、编码序列和终止子等核心元件[4]。AAV载体的基因组设计遵循模块化工程原则,包括启动子的智能选择、基因表达的动态调控系统以及生物安全开关设计等[22-24]。启动子的选择是载体设计的核心要素,其直接决定了转基因的空间表达特异性和表达强度[25]。
Kang等[26]研究发现,CMV、CAG等强启动子虽能驱动目的基因高效表达,但在肝脏等组织中可能因过度表达而诱发细胞应激反应及免疫激活,进而导致潜在的毒性风险。此外,载体设计中纳入表达调控模块(如可诱导系统、microRNA靶点调控[27]等),可实现更精细的空间和时间表达控制。这类调控策略对于中枢神经系统及肝脏等易受毒性影响的靶器官尤为重要,可显著提高基因治疗的安全性。
值得注意的是,AAV载体存在潜在的随机整合风险,可能引发插入突变甚至致癌效应。此外,基因组的稳定性亦受载体包装效率、病毒颗粒完整性及产物纯度等因素影响,这些问题均需在工艺开发及质量控制过程中进行系统考量,以确保临床应用的安全性。
2 AAV载体药物的毒性机制与临床前毒性表现
AAV载体药物输注可诱发全身性炎症反应、剂量依赖性免疫反应、输注相关反应(IARs)等罕见但危害性极大的不良反应[28]。系统性AAV给药可引发补体系统激活相关性微血管病(TMA)、急性肾损伤(类似非典型溶血尿毒综合征)、免疫介导的心肌炎及肝脏毒性反应[29]。
值得注意的是,高剂量AAV全身给药可能导致多器官(肝脏、肾脏、心脏或肺)功能衰竭,甚至导致患者死亡,其核心机制涉及宿主先天性及适应性免疫反应(如中和抗体、T细胞免疫应答)[17]。IARs的典型临床表现包括发热、低血压等急性症状,其发生机制可能与载体颗粒或杂质触发的免疫系统激活相关。
2.1 免疫相关毒性机制
AAV载体诱导的免疫反应是当前基因治疗安全性控制的关键问题,主要表现为先天性免疫激活和获得性免疫清除[30]。系统性给药,尤其是大剂量给药时,AAV衣壳蛋白可通过TLRs信号通路激活抗原提呈细胞(包括树突状细胞和巨噬细胞),进而启动炎症因子级联反应[31-32]。同时,AAV衣壳通过补体系统经典途径,引发补体消耗性血小板减少症(CAAP),这一现象在AAV8和AAV9载体相关临床试验中均有报道[29,33]。此外,针对AAV衣壳或转基因产物T细胞介导的清除反应同样是影响治疗持久性和安全性的关键风险因素[34]。
2.2 靶器官特异性毒性
AAV载体在不同靶器官中的毒性反应具有组织特异性,这主要与局部免疫微环境、载体转导效率以及转基因表达水平密切相关。以下就主要靶器官毒性反应及其机制进行阐述。
2.2.1 肝脏毒性
肝脏毒性是AAV系统性给药后最常见的不良反应,尤其在高表达启动子或高剂量载体条件下更易发生。其机制不仅涉及免疫介导的清除反应,还可能与肝细胞因高水平转基因表达所诱导的内源应激反应有关[30]。非人灵长类动物实验显示,高剂量AAV9给药可导致无症状的转氨酶升高或严重肝功能异常,伴随肝微血管损伤[35-36]。研究发现,AAV转导后microRNA-122的表达变化可调控肝细胞凋亡与炎症反应,为其毒性机制提供了分子层面依据[37]。
2.2.2神经系统毒性
近年来,神经系统毒性受到广泛关注。临床前研究证实,AAV经脑室或鞘内注射后,可在背根神经节(DRG)形成细胞水肿、轴突变性等病理改变[38]。这种DRG毒性的发生与病毒颗粒在DRG中高水平累积、免疫细胞浸润及局部炎症反应密切相关,可能引发感觉异常甚至神经功能障碍[39]。
2.2.3 心脏毒性
心脏毒性主要在肌肉注射或全身给药时出现,部分患者在治疗后出现肌钙蛋白升高,提示可能存在轻微心肌损伤[40]。其具体机制尚不明确,可能与AAV在心肌组织中的转导效率、衣壳相关免疫反应或转基因蛋白表达有关。
2.3 载体基因组整合风险
尽管AAV载体通常以表观非整合状态存在于宿主细胞中,但多项动物实验研究表明,在特定生理或病理条件下其DNA仍可能与宿主基因组发生低频整合[28],尤其在快速增殖组织(如婴幼儿肝脏)或基因修饰过程中,存在非靶向整合引发突变或潜在致癌风险。
AAV载体在AAVS1位点(19号染色体)可能存在整合偏好,其整合位点可影响c-MYC、RAS等原癌基因或抑癌基因表达,可能为潜在肿瘤发生提供“第二打击”(second hit)条件。AAV基因组中的游离DNA亦可能作为炎症刺激物持续存在,激活细胞内cGAS-STING信号通路,从而诱导慢性炎症反应。
上述机制提示AAV载体并非完全“惰性”地表达载体,其长期安全性依赖于给药剂量、组织靶向性、载体构建方式及个体免疫状态等多重因素[41]。因此,在AAV基因治疗药物的非临床研究及临床试验中,需持续开展对毒性机制的深入探究与长期随访。
2.4 遗传毒性
AAV载体在高剂量或特定生理条件下可能以低频率插入宿主基因组、引发插入突变和激活癌基因,增加肿瘤的发生风险[42]。AAV载体中的启动子及ITRs可能具有外源激活效应,干扰内源基因表达。应用递送CRISPR/Cas等编辑系统时,AAV介导的双链断裂可能引发染色体重排或大片段缺失,进一步加剧基因组不稳定性[43]。重组事件也可能诱导染色体异常,如片段丢失、重复或易位。AAV遗传毒性的发生与个体的发育阶段、细胞增殖状态、基因修复能力及给药剂量密切相关,尤其在幼年个体或高剂量治疗中风险更高。
3 AAV药物毒性先进检测技术
目前,AAV载体毒性的检测手段涵盖分子、细胞、组织以及体内动态水平,具体包括微滴式数字PCR(ddPCR)、单细胞转录组测序(scRNA-seq)、酶联免疫斑点试验(ELISPOT)、纳米流式检测技术、液体活检以及生物发光成像(BLI)等。上述新型检测技术的应用显著提升了对AAV药物毒性风险的早期识别能力,并实现了对毒性来源的精准定位和动态监控。
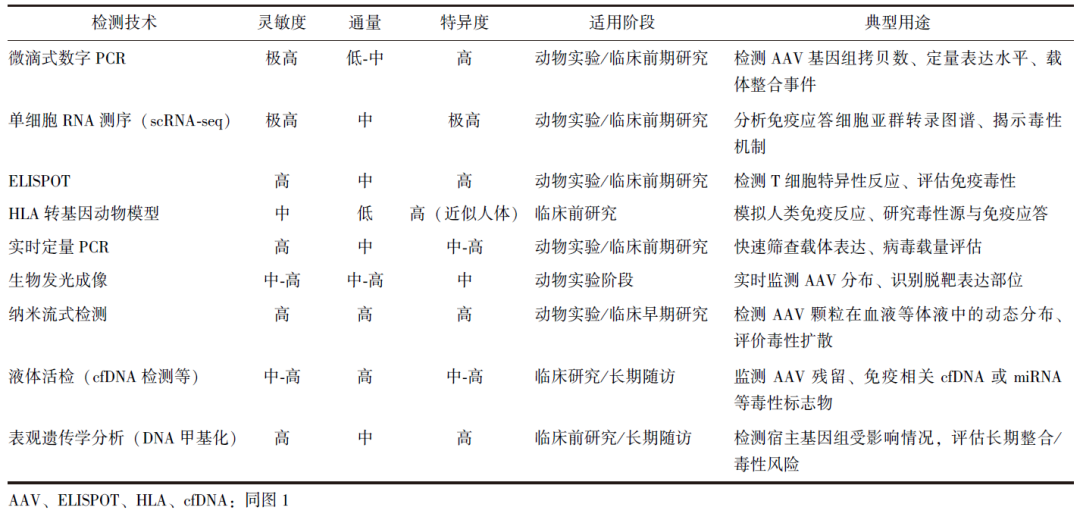
各类检测技术在灵敏度、特异度、通量及适用阶段等方面各具优势,应根据研究目标合理选取或联合使用。例如,在临床前研究阶段可优先使用BLI、ddPCR及ELISPOT联合评估表达效率与免疫毒性;而在临床应用及随访阶段,则推荐结合液体活检技术与表观遗传学监测技术,实现毒性事件的早期预警和动态评估,常用的AAV载体毒性检测技术比较详见表1。
表1 常用AAV载体毒性检测技术比较
3.1 分子水平检测技术
分子层面的检测技术能够对AAV载体基因组行为进行精准解析,在基因水平识别载体整合、突变或表达异常,为深入研究其毒性机制提供了关键切入点。
ddPCR技术作为一种高精度的定量分析方法,近年来在AAV载体基因组检测中得到了广泛应用[44]。该技术通过双探针设计(FAM/HEX双通道),可同步监测载体拷贝数及宿主基因组损伤标志物(如γ-H2AX),从而揭示AAV载体引起的剂量依赖性DNA损伤应答。此外,ddPCR技术还可用于检测外源基因的表达水平变化,为解析不同给药剂量下的免疫反应提供分子依据。
单细胞RNA测序能够在单细胞水平解析AAV载体引发的免疫细胞活化与功能变化。通过单细胞scRNA-seq技术,研究人员可详细揭示AAV载体在不同免疫细胞亚群中的转录组特征,进一步了解AAV引发的免疫反应特异性及相关毒性机制。例如,scRNA-seq能够捕捉免疫细胞激活后的动态变化,识别与免疫清除相关的基因表达模式,为AAV药物的免疫毒性预警提供有力支持[45]。
3.2 免疫毒性评估新策略
AAV载体的免疫毒性是限制其临床应用的重要安全隐患。传统的免疫毒性检测方法多基于全身性免疫反应的监测,难以有效识别早期或局部发生的免疫反应。为提高免疫毒性评估的精准性,近年来多种新型检测策略逐渐得到开发与应用。
人类白细胞抗原(HLA)转基因动物模型通过将人类HLA基因转入小鼠或其他动物体内,可在免疫原性研究中模拟人体免疫系统对AAV载体的应答过程[46]。该模型能够精准模拟AAV载体诱导的T细胞激活与清除等免疫反应,为评估其免疫毒性提供可靠工具。
ELISPOT技术作为一种高灵敏度的免疫检测方法,广泛用于包括T细胞反应在内的免疫细胞分泌活性分析。在AAV治疗过程中,借助ELISPOT动态监测T细胞应答可早期识别免疫细胞的活化状态,并评估免疫反应的强度与类型,对于判断AAV载体是否引发免疫清除或其他不良免疫反应至关重要。
3.3 组织分布与脱靶效应检测
BLI技术是研究AAV载体在体内分布的有效方法之一。该技术通过标记AAV载体中的特定基因或标签蛋白,实时跟踪其在动物体内的分布与动态变化[47]。此外,空间代谢组学技术[如基质辅助激光解吸电离质谱成像(MALDI-MSI)]能够以5 μm分辨率精确定位AAV载体在肝小叶3区中的异常蓄积。
基于Transformer模型的人工智能系统通过整合分析百万级单细胞数据,可实现毒性风险的精准分级(AUC=0.94)[48]。通过耦合BLI实时定位与单细胞质谱流式(CyTOF)技术[49],研究者发现AAV8在胰腺组织中的异位沉积(每克组织1×10³ vg)可激活浆细胞样树突状细胞中的TLR9信号通路,促使IFN-α分泌量达2500 pg/mL,这一机制为脱靶毒性的精准干预提供了新靶点。
纳米流式检测技术则是近年新兴的外周血AAV载体颗粒分布分析技术,该方法可精准测定血液中AAV载体颗粒的大小、数量及其分布情况,从而系统揭示AAV载体在全身循环系统中的动态行为特征[50]。借助纳米流式技术,研究人员能够更为精准地评估AAV载体的全身暴露情况,并深入探究其潜在脱靶效应及相关毒性机制。
3.4 长期安全性监测技术
AAV基因治疗的长期安全性挑战聚焦于载体基因组的时空动态调控以及宿主表观遗传稳态的维持,为此开发长期安全性监测技术具有重要意义。液体活检技术作为一种无创检测手段,可通过检测血液中游离DNA、外泌体及RNA等生物标志物,动态追踪患者体内潜在的毒性反应或异常变化[51],为长期随访提供新思路。
表观遗传学修饰检测是评估AAV基因治疗长期效应的另一重要技术。近年来,DNA甲基化分析作为一种表观遗传学修饰检测方法,已被广泛用于基因治疗的安全性评估[52]。通过对AAV载体转导后宿主细胞基因组DNA甲基化状态进行分析,研究人员能够识别与AAV基因组整合或长期稳定性相关的表观遗传变化,进而评估其潜在的致癌风险及免疫反应持续性,为临床安全性预警提供分子依据。
4 毒性干预与风险缓解策略
随着对AAV载体诱发毒性机制的深入研究,建立系统性的毒性干预与风险控制策略已成为提升AAV基因治疗安全性的关键环节。目前主要策略涵盖载体设计优化、给药剂量控制、免疫联合治疗、递送途径优化以及个体化治疗管理等多个方面[53]。
4.1 载体设计与剂量控制策略
优化AAV载体结构是降低其毒性风险的重要前提。
首先,选用低免疫原性血清型(如AAVrh10、AAVDJ)或通过定向进化技术构建新型衣壳变体,可有效降低宿主先天及适应性免疫系统识别风险。如通过定向进化筛选获得的AAVrh74变体,可将中和抗体逃逸率提升至92%(野生型AAV2仅为35%),同时仍能维持视网膜转导效率(5×10³ vg/cell)。
其次,采用限制性启动子或组织特异性启动子,有助于避免非靶器官表达带来的“脱靶毒性”,如肝脏或神经系统异常表达所导致的炎症反应。此外,非整合型载体构建策略、封装效率优化及纯化工艺标准化均有助于提升表达效率,同时降低载体相关毒性[54]。
多数毒性事件与超剂量给药密切相关,因此,剂量控制亦是实现安全递送的关键环节。临床前动物实验数据及患者个体基线评估指标(如中和抗体滴度、免疫谱)应作为制订个体化给药方案的重要依据[21]。同时,采用剂量递增策略或分阶段递送(如“双次注射”或“局部+系统联合”),有助于控制系统毒性并维持治疗效果。
4.2 免疫联合治疗
在AAV基因治疗引发的毒性反应中,免疫介导反应最为常见,尤其以CD8+T细胞介导的肝损伤和神经炎症等为主要表现。针对此类免疫相关毒性,临床上已逐步建立起一系列免疫抑制及调节策略[54]。
例如,糖皮质激素的预防性或同步给药已成为控制肝毒性的标准方法,可有效抑制转氨酶升高并减缓炎症进程。同时,采用环孢素A、来氟米特或他克莫司等免疫抑制剂进行短期联合治疗,也在多项临床试验中显示出良好毒性缓解效果。
在新型免疫耐受诱导策略中,低剂量雷帕霉素(1 mg/kg)联合AAVrh10载体给药,可显著提升CD4+CD25+FOXP3+ 调节性T细胞比例[从5.2%提升至14.7%(P<0.001)],并能够维持免疫耐受状态长达12个月。
近年来,更加精准的免疫干预策略亦在不断发展。例如,靶向IL-6、肿瘤坏死因子-α(TNF-α)等细胞因子的抗体药物可用于控制严重细胞因子综合征(sCRS);而调节性T细胞激活或IL-10干预策略则可增强免疫耐受,对高剂量治疗人群具有重要应用前景。需强调的是,所有免疫抑制策略均应在明确患者感染风险及免疫状态基础上制订,并建立动态评估与早期停药机制。
4.3 递送路径及方式优化
AAV的给药路径直接决定其生物分布与毒性风险。研究表明,经硬膜下或脑室内注射可在一定程度上避免全身免疫激活,但存在局部神经毒性加重的风险[55];而肌肉注射虽毒性较低,但对系统性疾病治疗效果有限。相比之下,门静脉注射、肝动脉导管注射等靶向式递送策略,可显著减少外周毒性,并提高靶器官转导效率。
另外,近年来新兴的可控释放载体(如凝胶包裹AAV)[56]、靶向纳米粒子[57]以及人工外泌体递送系统,已在动物实验中显示出良好的生物相容性和免疫逃逸能力,有望成为未来优化AAV递送方式的新方向。
4.4 个体化筛选与长期毒性监测
不同个体的基因型、免疫状态及合并基础疾病将显著影响AAV基因治疗的毒性风险。因此,在治疗前全面评估患者的免疫表型、HLA分型、病毒抗体检测及既往免疫病史,对于毒性风险预测具有重要价值[58]。对于高风险患者而言,可采用“低剂量、低频率”的给药策略,并联合动态免疫监测与调节以控制潜在风险。在治疗后期,需构建长期毒性随访体系。以液体活检、生物标志物、ctDNA动态监测等技术为基础,辅以定期MRI、转氨酶、肌酶等检查,可对潜在的迟发性毒性事件进行有效识别与干预。
AAV基因治疗产品作为新兴的治疗药物,AAV载体毒性问题的应对需形成“前瞻设计-实时监测-及时干预-个体化管理”的全链条策略体系。未来,随着多组学监测平台和智能化随访系统的建立,将进一步提升AAV治疗的毒性预警能力、缓解效率及精准度,为AAV基因治疗的广泛应用奠定坚实基础。
5 小结与展望
本文系统梳理了AAV介导基因治疗的主要毒性表现,并结合现有研究,总结了载体免疫原性、非特异性组织表达、基因组插入与炎症反应等毒性机制。此外,围绕当前主流毒性检测技术(如单细胞组学、血清学分析、分子成像等)进行了灵敏度、特异度与通量等维度的比较,为研究者和临床医生选择合适的毒性评估工具提供了参考依据。在此基础上,进一步探讨了基于载体优化、免疫调控、递送路径改进及个体化管理的干预与缓解策略,提出构建“设计-监测-干预”全链条闭环控制体系的构想,以提升AAV疗法的可控性与安全性。
然而,AAV基因治疗的安全性优化仍面临多重挑战。首先,毒性机制的多样性与个体差异性需在更大样本、更长期的随访基础上进行系统总结;其次,检测技术需向“早期、动态、低侵袭”方向发展,以实现真正的前瞻性监测;再次,干预策略需结合人工智能、大数据、系统生物学等多学科工具,推动毒性预测模型与精准管理策略的建立。更为关键的是,未来AAV基因治疗需在疗效与安全性之间实现动态平衡,兼顾短期临床需求与长期健康风险的双重考量。
综上所述,AAV载体虽已成为基因治疗领域的重要平台,但其毒性控制问题仍需持续关注与深入研究,在机制认知、检测体系与干预策略三方面形成闭环,推动AAV基因治疗技术从“可用”走向“可控”,实现其在更广泛疾病领域的安全落地与规模化应用。
参考文献
[1]Wang J H, Gessler D J, Zhan W, et al. Adeno-associated virus as a delivery vector for gene therapy of human diseases[J]. Signal Transduct Target Ther, 2024, 9(1): 78.
[2]Pupo A, Fernández A, Low S H, et al. AAV vectors: the Rubik's cube of human gene therapy[J]. Mol Ther, 2022, 30(12): 3515-3541.
[3]Fakhiri J, Landegger L D, Grimm D. Breaking the sound barrier: towards next-generation AAV vectors for gene therapy of hearing disorders[J]. Hear Res, 2022, 413: 108092.
[4]Wang D, Tai P W L, Gao G P. Adeno-associated virus vector as a platform for gene therapy delivery[J]. Nat Rev Drug Discov, 2019, 18(5): 358-378.
[5]Srivastava A. Adeno-associated virus-mediated gene transfer[J]. J Cell Biochem, 2008, 105(1): 17-24.
[6]Allocca M, Doria M, Petrillo M, et al. Serotype-dependent packaging of large genes in adeno-associated viral vectors results in effective gene delivery in mice[J]. J Clin Invest, 2008, 118(5): 1955-1964.
[7]Beattie S G, Goetzman E, Tang Q, et al. Recombinant adeno-associated virus-mediated gene delivery of long chain acyl coenzyme A dehydrogenase (LCAD) into LCAD-deficient mice[J]. J Gene Med, 2008, 10(10): 1113-1123.
[8]Assaf B T, Whiteley L O. Considerations for preclinical safety assessment of adeno-associated virus gene therapy products[J]. Toxicol Pathol, 2018, 46(8): 1020-1027.
[9]Xia Y J, He J Y, Zhang H J, et al. AAV-mediated gene transfer of DNase I in the liver of mice with colorectal cancer reduces liver metastasis and restores local innate and adaptive immune response[J]. Mol Oncol, 2020, 14(11): 2920-2935.
[10]Fuchs S P, Martinez-Navio J M, Rakasz E G, et al. Liver-directed but not muscle-directed AAV-antibody gene transfer limits humoral immune responses in rhesus monkeys[J]. Mol Ther Methods Clin Dev, 2020, 16: 94-102.
[11]Whiteley L O. An overview of nonclinical and clinical liver toxicity associated with AAV gene therapy[J]. Toxicol Pathol, 2023, 51(7/8): 400-404.
[12]Chen X, Dong T, Hu Y H, et al. Intrathecal AAV9/AP4M1 gene therapy for hereditary spastic paraplegia 50 shows safety and efficacy in preclinical studies[J]. J Clin Invest, 2023, 133(10): e164575.
[13]Bosman M, Krüger D, Van Assche C, et al. Doxorubicin-induced cardiovascular toxicity: a longitudinal evaluation of functional and molecular markers[J]. Cardiovasc Res, 2023, 119(15): 2579-2590.
[14]Colella P, Ronzitti G, Mingozzi F. Emerging issues in AAV-mediated in vivo gene therapy[J]. Mol Ther Methods Clin Dev, 2018, 8: 87-104.
[15]国家药品监督管理局药品审评中心. 腺相关病毒载体基因治疗产品非临床研究技术指导原则[EB/OL]. (2024-12-31)[2025-06-01]. https://www.cde.org.cn/zdyz/domesticinfopage?zdyzIdCODE=4f4a354747dcd2e5fd8cdeb3a75f8392.
[16]Zincarelli C, Soltys S, Rengo G, et al. Analysis of AAV serotypes 1-9 mediated gene expression and tropism in mice after systemic injection[J]. Mol Ther, 2008, 16(6): 1073-1080.
[17]Duan D S. Lethal immunotoxicity in high-dose systemic AAV therapy[J]. Mol Ther, 2023, 31(11): 3123-3126.
[18]Doshi B S, Markmann C A, Novak N, et al. Use of CD19-targeted immune modulation to eradicate AAV-neutralizing antibodies[J]. Mol Ther, 2025, 33(7): 3073-3085.
[19]Bish L T, Sleeper M M, Brainard B, et al. Percutaneous transendocardial delivery of self-complementary adeno-associated virus 6 achieves global cardiac gene transfer in canines[J]. Mol Ther, 2008, 16(12): 1953-1959.
[20]Khabou H, Desrosiers M, Winckler C, et al. Insight into the mechanisms of enhanced retinal transduction by the engineered AAV2 capsid variant-7m8[J]. Biotechnol Bioeng, 2016, 113(12): 2712-2724.
[21]Mehta N, Gilbert R, Chahal P S, et al. Optimization of adeno-associated viral (AAV) gene therapies vectors for balancing efficacy, longevity and safety for clinical application[J]. Gene Ther, 2025, 32(3): 197-210.
[22]Khabou H, Garita-Hernandez M, Chaffiol A, et al. Noninvasive gene delivery to foveal cones for vision restoration[J]. JCI Insight, 2018, 3(2): 96029.
[23]Lisowski L, Dane A P, Chu K, et al. Selection and evaluation of clinically relevant AAV variants in a xenograft liver model[J]. Nature, 2014, 506(7488): 382-386.
[24]Fischer K B, Collins H K, Callaway E M. Sources of off-target expression from recombinase-dependent AAV vectors and mitigation with cross-over insensitive ATG-out vectors[J]. Proc Natl Acad Sci U S A, 2019, 116(52): 27001-27010.
[25]Nieuwenhuis B, Laperrousaz E, Tribble J R, et al. Improving adeno-associated viral (AAV) vector-mediated transgene expression in retinal ganglion cells: comparison of five promoters[J]. Gene Ther, 2023, 30(6): 503-519.
[26]Kang J Y, Huang L J, Zheng W T, et al. Promoter CAG is more efficient than hepatocyte-targeting TBG for transgene expression via rAAV8 in liver tissues[J]. Mol Med Rep, 2022, 25(1): 16.
[27]Marquez J, Fernandez-Piñeiro I, Araúzo-Bravo M J, et al. Targeting liver sinusoidal endothelial cells with miR-20a-loaded nanoparticles reduces murine colon cancer metastasis to the liver[J]. Int J Cancer, 2018, 143(3): 709-719.
[28]Keeler A M, Zhan W, Ram S, et al. The curious case of AAV immunology[J]. Mol Ther, 2025, 33(5): 1946-1965.
[29]Salabarria S M, Corti M, Coleman K E, et al. Thrombotic microangiopathy following systemic AAV administration is dependent on anti-capsid antibodies[J]. J Clin Invest, 2024, 134(1): e173510.
[30]Ertl H C J. Immunogenicity and toxicity of AAV gene therapy[J]. Front Immunol, 2022, 13: 975803.
[31]Mays L E, Wilson J M. The complex and evolving story of T cell activation to AAV vector-encoded transgene products[J]. Mol Ther, 2011, 19(1): 16-27.
[32]Alakhras N S, Moreland C A, Wong L C, et al. Essential role of pre-existing humoral immunity in TLR9-mediated type I IFN response to recombinant AAV vectors in human whole blood[J]. Front Immunol, 2024, 15: 1354055.
[33]Arjomandnejad M, Dasgupta I, Flotte T R, et al. Immunogenicity of recombinant adeno-associated virus (AAV) vectors for gene transfer[J]. BioDrugs, 2023, 37(3): 311-329.
[34]Mingozzi F, Maus M V, Hui D J, et al. CD8+ T-cell responses to adeno-associated virus capsid in humans[J]. Nat Med, 2007, 13(4): 419-422.
[35]Hordeaux J, Lamontagne R J, Song C J, et al. High-dose systemic adeno-associated virus vector administration causes liver and sinusoidal endothelial cell injury[J]. Mol Ther, 2024, 32(4): 952-968.
[36]Hudry E, Aihara F, Meseck E, et al. Liver injury in cynomolgus monkeys following intravenous and intrathecal scAAV9 gene therapy delivery[J]. Mol Ther, 2023, 31(10): 2999-3014.
[37]Nakamura M, Kanda T, Sasaki R, et al. MicroRNA-122 inhibits the production of inflammatory cytokines by targeting the PKR activator PACT in human hepatic stellate cells[J]. PLoS One, 2015, 10(12): e0144295.
[38]Hordeaux J, Buza E L, Dyer C, et al. Adeno-associated virus-induced dorsal root ganglion pathology[J]. Hum Gene Ther, 2020, 31(15/16): 808-818.
[39]Hinderer C, Katz N, Buza E L, et al. Severe toxicity in nonhuman primates and piglets following high-dose intraven-ous administration of an adeno-associated virus vector expressing human SMN[J]. Hum Gene Ther, 2018, 29(3): 285-298.
[40]Mongkolpathumrat P, Nernpermpisooth N, Kijtawornrat A, et al. Adeno-associated virus 9 vector-mediated cardiac-selective expression of human secretory leukocyte protease inhibitor attenuates myocardial ischemia/reperfusion injury[J]. Front Cardiovasc Med, 2022, 9: 976083.
[41]Batty P, Fong S, Franco M, et al. Vector integration and fate in the hemophilia dog liver multiple years after AAV-FⅧ gene transfer[J]. Blood, 2024, 143(23): 2373-2385.
[42]Nguyen G N, Everett J K, Kafle S, et al. A long-term study of AAV gene therapy in dogs with hemophilia A identifies clonal expansions of transduced liver cells[J]. Nat Biotechnol, 2021, 39(1): 47-55.
[43]Macarrón Palacios A, Korus P, Wilkens B G C, et al. Revolutionizing in vivo therapy with CRISPR/Cas genome editing: breakthroughs, opportunities and challenges[J]. Front Genome Ed, 2024, 6: 1342193.
[44]Wang Y, Menon N, Shen S, et al. A qPCR method for AAV genome titer with ddPCR-level of accuracy and precision[J]. Mol Ther Methods Clin Dev, 2020, 19: 341-346.
[45]Wang A, Zhu X X, Bie Y Y, et al. Single-cell RNA-sequencing reveals a profound immune cell response in human cytomegalovirus-infected humanized mice[J]. Virol Sin, 2024, 39(5): 782-792.
[46]Masse-Ranson G, Dusséaux M, Fiquet O, et al. Accelerated thymopoiesis and improved T-cell responses in HLA-A2/-DR2 transgenic BRGS-based human immune system mice[J]. Eur J Immunol, 2019, 49(6): 954-965.
[47]Bing S J, Seirup M, Hoang T T, et al. Rational immunosilencing of a promiscuous T-cell epitope in the capsid of an adeno-associated virus[J]. Nat Biomed Eng, 2024, 8(2): 193-200.
[48]Bourceau P, Geier B, Suerdieck V, et al. Visualization of metabolites and microbes at high spatial resolution using MALDI mass spectrometry imaging and in situ fluorescence labeling[J]. Nat Protoc, 2023, 18(10): 3050-3079.
[49]Bucher K, Rodríguez-Bocanegra E, Wissinger B, et al. Extra-viral DNA in adeno-associated viral vector preparations induces TLR9-dependent innate immune responses in human plasmacytoid dendritic cells[J]. Sci Rep, 2023, 13(1): 1890.
[50]Filipe V, Hawe A, Jiskoot W. Critical evaluation of Nanoparticle Tracking Analysis (NTA) by NanoSight for the measurement of nanoparticles and protein aggregates[J]. Pharm Res, 2010, 27(5): 796-810.
[51]Nikanjam M, Kato S, Kurzrock R. Liquid biopsy: current technology and clinical applications[J]. J Hematol Oncol, 2022, 15(1): 131.
[52]Lister R, Pelizzola M, Dowen R H, et al. Human DNA methylomes at base resolution show widespread epigenomic differences[J]. Nature, 2009, 462(7271): 315-322.
[53]Maurya S, Sarangi P, Jayandharan G R. Safety of adeno-associated virus-based vector-mediated gene therapy-impact of vector dose[J]. Cancer Gene Ther, 2022, 29(10): 1305-1306.
[54]Li C W, Samulski R J. Engineering adeno-associated virus vectors for gene therapy[J]. Nat Rev Genet, 2020, 21(4): 255-272.
[55]Stone D, Aubert M, Jerome K R. Adeno-associated virus vectors and neurotoxicity—lessons from preclinical and human studies[J]. Gene Ther, 2025, 32(1): 60-73.
[56]Long Y Q, Hu J, Liu Y, et al. Development of puerarin-loaded poly(lactic acid) microspheres for sustained ocular delivery: in vitro/vivo evaluation[J]. Eur J Pharm Biopharm, 2024, 204: 114524.
[57]Ye T T, Zhong Z F, Cappellesso F, et al. CO-DELIVERY of glutamic acid-extended peptide antigen and imidazoquinoline TLR7/8 agonist via ionizable lipid nanoparticles induces protective anti-tumor immunity[J]. Biomaterials, 2024, 311: 122693.
[58]Singh H, Maiti K, Saha S, et al. Meta-analysis revealed HLA susceptibility markers in ANCA-associated vasculitis and its clinical subtypes[J/OL]. Rheumatology (Oxford): keaf265[2025-06-01]. https://doi.org/10.1093/rheumatology/keaf265.